组织平均值确实可能掩盖局部严重损伤,但它也不能反过来告诉我们,有多少细胞已经失去功能。 人体单纤维研究观察到了高缺失负担与局部呼吸链异常的对应;公开供者数据支持缺失相关读数随年龄上升。两者之间仍隔着分布、拷贝数、检测覆盖和功能测量,不能直接合并成一个“线粒体衰老百分比”。
本篇以人体骨骼肌为主,重分析公开供者与缺失位置数据,核查单纤维研究的取样分母,并用空间混合和储备模型解释这些读数为何不能互换。证据检索截至2026年9月21日。
先分清三个问题
线粒体DNA简称mtDNA。一段DNA在部分拷贝中缺失,而其余拷贝仍保留相应序列,这种共存可以用缺失拷贝占比描述,通常称为异质性比例。这里讨论的是大片段缺失,不把点突变、线粒体数量、膜电位或所有形式的“线粒体损伤”混成同一个指标。
| 测量对象 | 能提供的信息 | 尚不能单独回答的问题 |
|---|---|---|
| 组织混合样本中的缺失相关读数 | 某种检测方法捕获到的缺失频率 | 缺失集中在哪些细胞或片段 |
| 单根肌纤维沿长度方向的DNA与酶染色 | 局部负担与局部呼吸链异常是否对应 | 整块肌肉的力量、耐力或长期损失 |
| 肌肉呼吸、运动表现等功能测量 | 特定条件下的生理功能 | 变化是否由mtDNA缺失独立造成 |
肌纤维还是一种特别容易被平均值误导的细胞:它很长,含有多个细胞核。同一根纤维的一小段异常,不等于整根纤维处处异常;一份“每个二倍体细胞核的mtDNA拷贝数”,也不是一整根肌纤维的拷贝数。单纤维研究 检测方法研究
人体证据:异常确实可以集中在很短的一段
2006年Bua等人研究了12位49—93岁供者的尸检肌肉。这些人没有已知线粒体肌病,但部分存在心血管、肾脏或其他疾病,因此不能视作健康人群的随机样本。原始研究
研究者先通过组织化学染色寻找异常区域:细胞色素c氧化酶(COX)活性缺失,同时琥珀酸脱氢酶(SDH)染色增强。随后,从7位供者挑出的48根这类异常肌纤维中,均检出了mtDNA缺失。正常对照纤维中没有检出,并不等于其缺失频率绝对为零。
真正沿长度方向进行定量分析的,是2位供者的4根纤维。异常区域的缺失比例可接近99%,过渡区域较低,邻近正常区域更低。这里支持的是局部DNA负担与局部酶异常的对应,不能把48根选中的异常纤维都算成48个独立的人,更不能据此拟合一个适用于所有人的90%阈值。
一个很有启发性的反差是:常被研究的4,977碱基对“常见缺失”,在这些组织混合样本中都能检测到,却没有出现在被选中的48根异常纤维里;另一个7,664碱基对缺失在异常纤维中出现了5次,混合样本中的水平反而更低。来源1
这并不说明常见缺失无害。它说明,在整份组织里容易测到的变异,不一定就是选定局部病灶中占主导的变异。 取样位置、病灶选择和检测方法会共同影响答案。
“三成肌纤维受累”,并不是直接数过整条纤维
同一研究常被引用的另一组数字,是不同年龄供者约有6%、22%和31%的肌纤维受累。回到原文,这些数字包含一步外推。
研究者在三份标本中,各追踪约2毫米长的连续切片,分别观察到:49岁供者36/18,367根、67岁供者65/9,285根、92岁供者98/10,652根纤维出现异常区域。窗口内的比例约为0.20%、0.70%和0.92%。之后,作者把结果外推到约65毫米的整根纤维。来源1
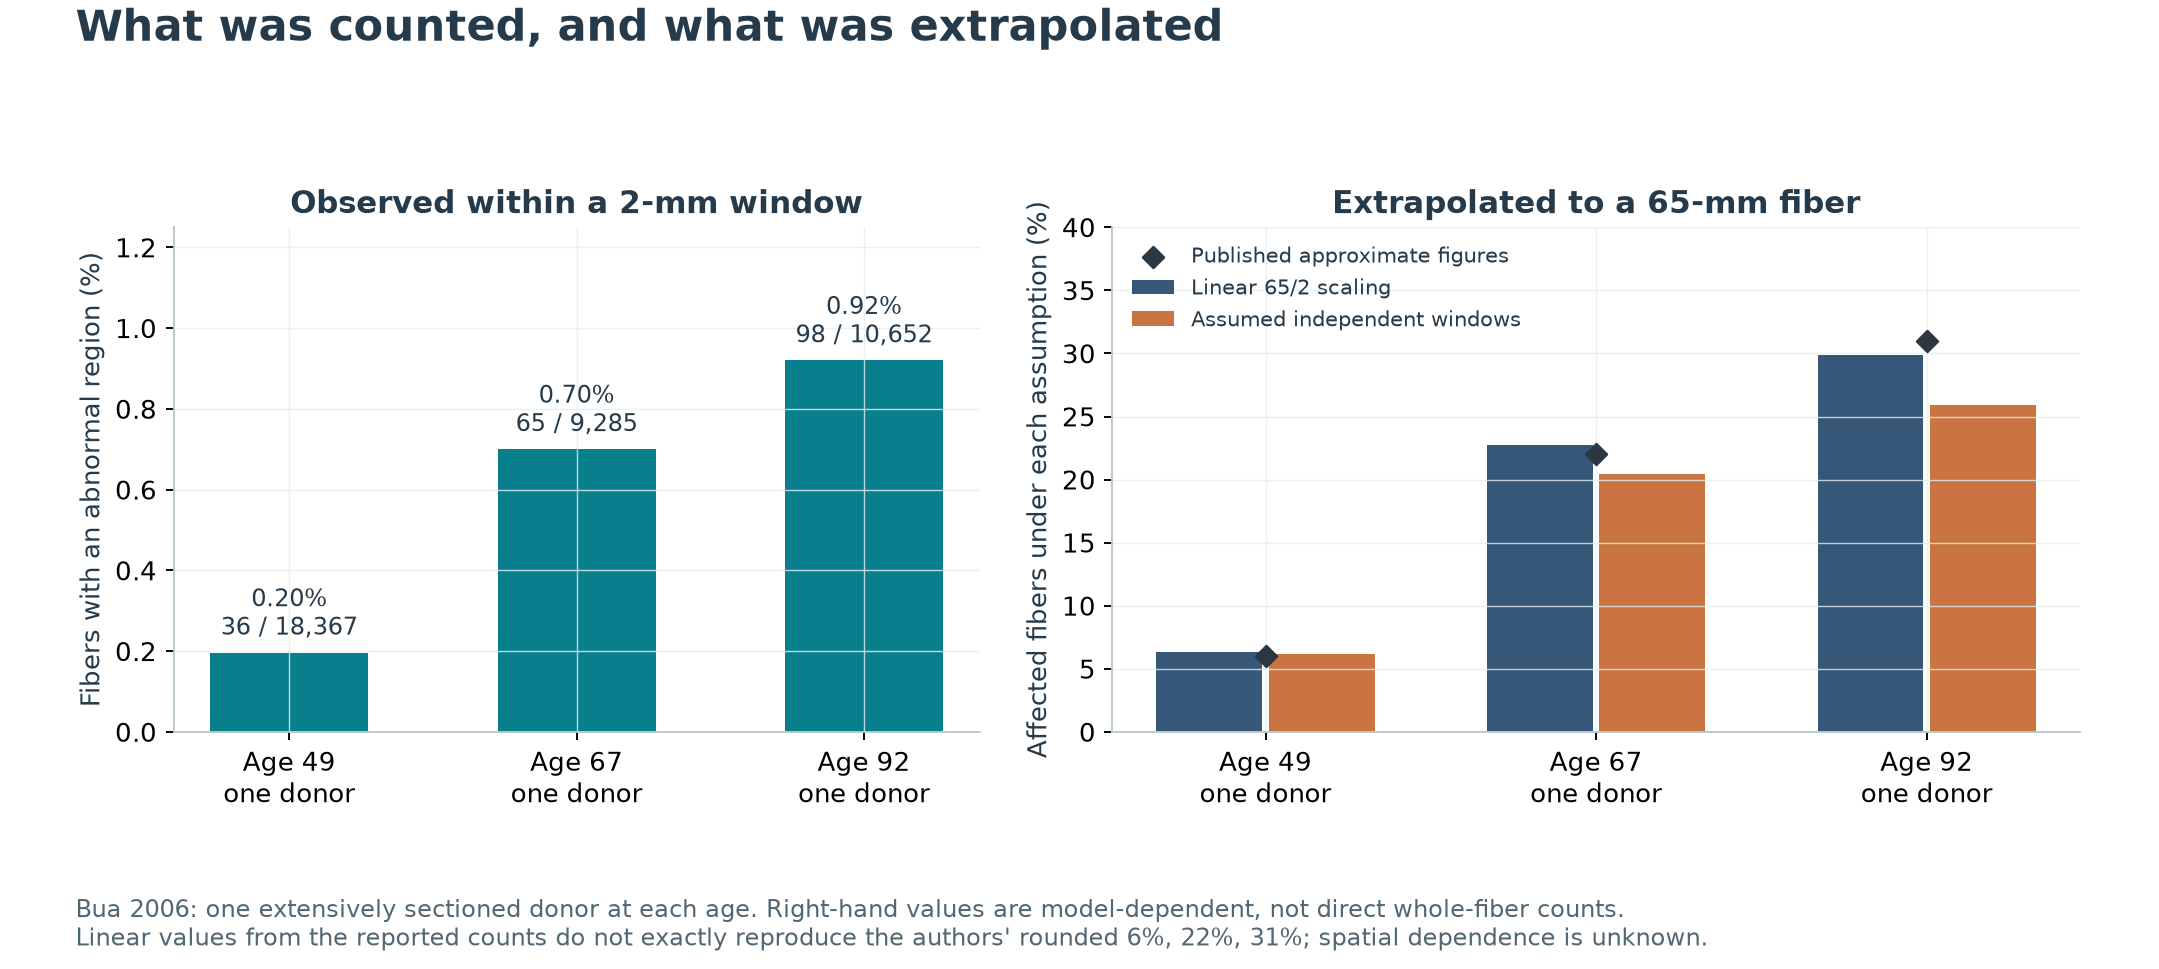
直接用公开计数乘以65/2,我们得到6.37%、22.75%和29.90%,与文章概括的6%、22%、31%并非逐项完全一致。若改为一个同样简化的假设:各取样窗口互相独立,整根至少出现一处异常的概率为1 − (1 − p)^(65/2),则得到6.18%、20.41%和25.95%。
两种算法都没有验证真实的空间分布。病灶有长度,可能跨越窗口边界,也可能在同一根纤维上聚集或重复出现。因此,后一个算法不是对前一个的“正确替代”;它只是显示外推依赖假设。三个位点代表三位供者,也不能因为数了几万根纤维,就给一般人群的年龄趋势附上很窄的置信区间。
公开数据重分析:年龄关联存在,测到的仍是混合读数
2023年Vandiver等人用纳米孔长读长测序研究mtDNA缺失,并与数字PCR比较。我们取得其补充样本表和公开缺失位置清单,按供者汇总,再拟合年龄与缺失记录率的关系。论文与补充资料
样本表中的肌肉部分包含15名男性,年龄26—81岁。论文摘要及部分方法文字写20—81岁,但实际表格和结果段支持26—81岁。本篇使用真实样本表的范围。
以公开坐标按环形基因组规则计算的、超过2 kb的缺失记录数,除以各供者的mtDNA比对读段数,得到每位供者的记录率。对其取以10为底的对数后进行不按读段数加权的回归,区间采用HC3方差与13个自由度的t分布:
- 相差10岁对应的拟合记录率比为2.26倍,HC3稳健95%区间为1.81—2.83倍。
- 样本内R²约为0.844,与论文所述的0.84接近;这不是对新供者的预测验证。
- 每次去掉一位供者,拟合的十岁记录率比约为2.19—2.45倍。
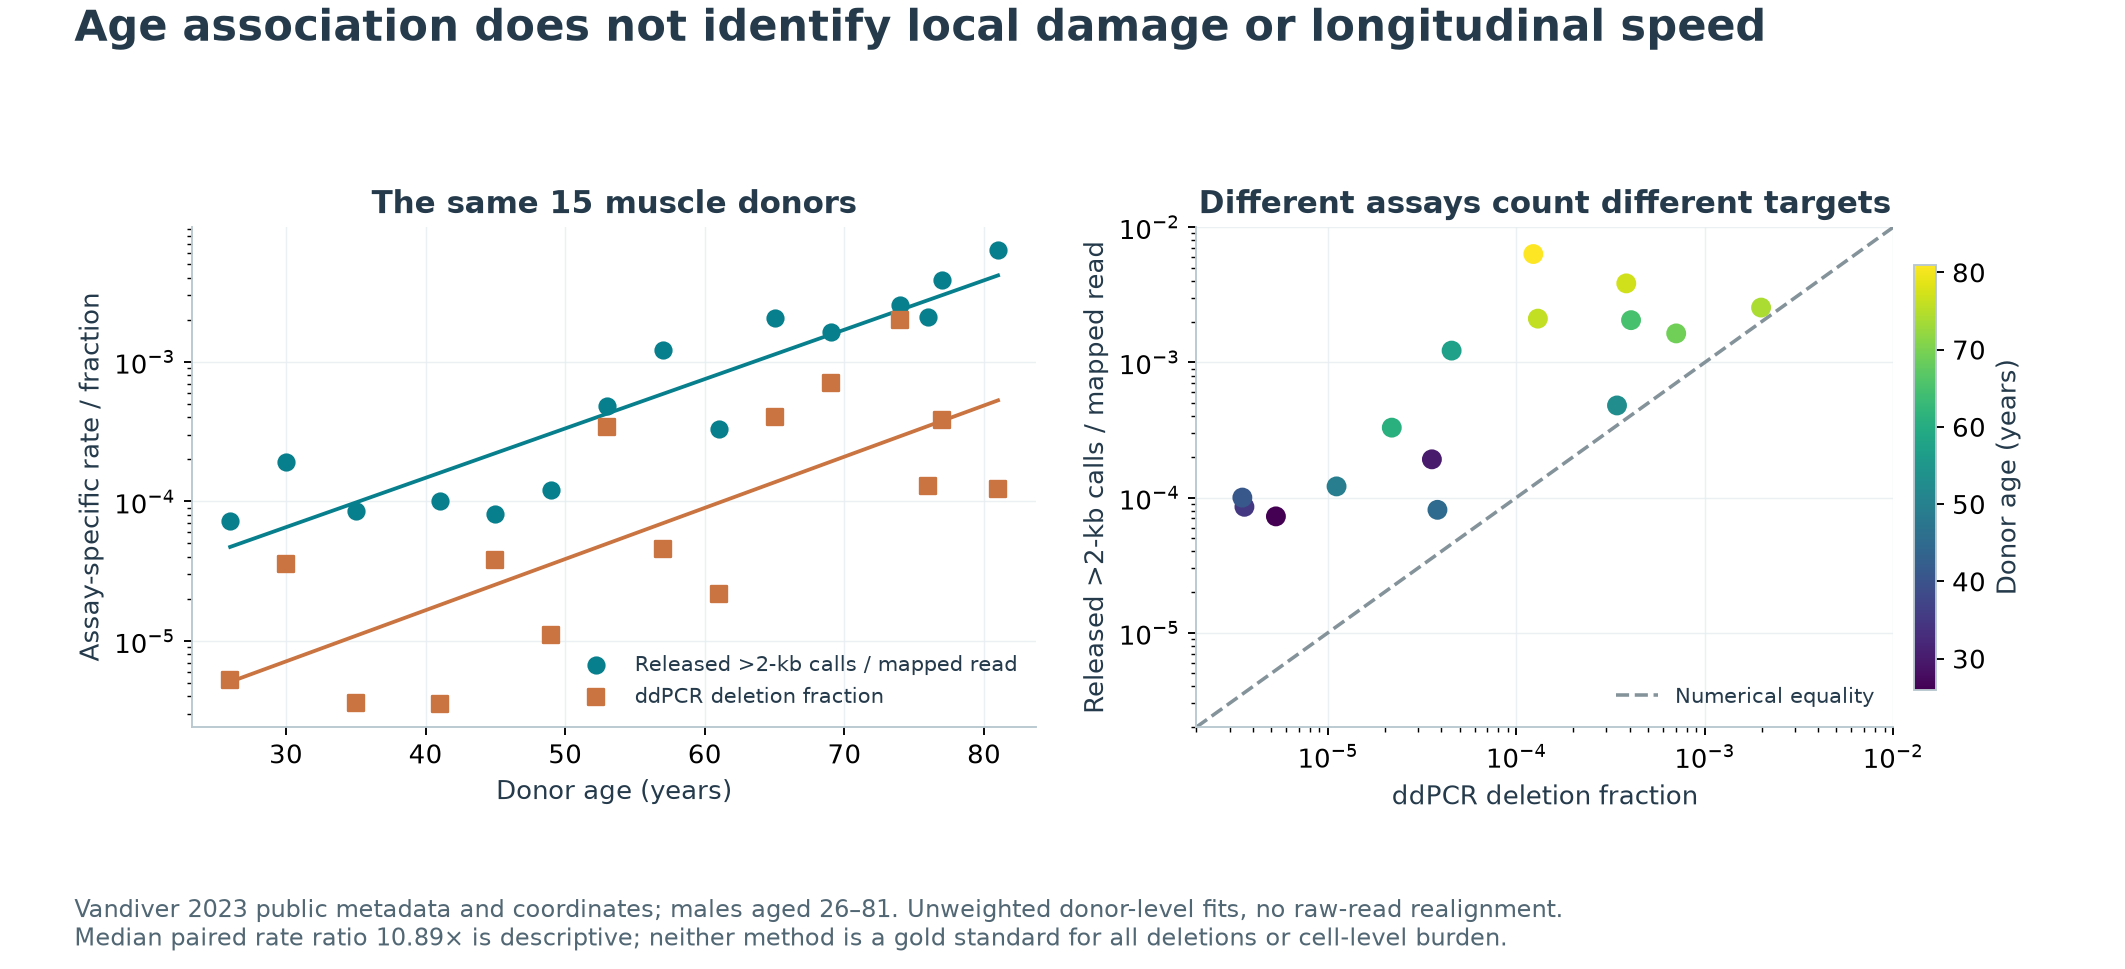
这里的2.26倍,是不同年龄供者之间的横断面关联,不是观察同一个人十年后增长了2.26倍。 样本少、全部为男性,取样和健康背景也限制外推。原研究还用同一组样本比较过不同缺失长度阈值,因此较高的R²不能直接当作年龄预测能力。
同一批供者的两种检测结果也不能当作两项独立重复。我们计算的纳米孔记录率与ddPCR缺失比例之比,中位数约10.9,个体间从约1.3到51.5。两种方法覆盖的缺失类型、引物或切割位点、读段长度和识别算法不同;较高的数字并不自动意味着测得了“真实损伤的十倍”。
自审时,我们补做了一个探索性检查:样本的平均mtDNA读长可能影响大缺失的检出,且其对数与年龄的相关约为0.53。将年龄和对数平均读长同时纳入模型后,十岁年龄差对应的记录率比约为2.46,HC3稳健95%区间2.03—2.99,方向仍为正。这个仅有15人的条件模型没有排除其他技术或生物学混杂,不能称为已校正所有检测偏差。
较早的2020年在线发表研究,在14名男性肌肉样本中也报告缺失读数随年龄上升。其常被引用的约98倍,是把作者回归式代入20岁与80岁得到的横断面比较,并非60年的个体随访。我们核对的补充文件提供引物、探针和限制性酶切验证,没有提供可让我们重新拟合这14人的完整个体数据;它与2023年样本是否重叠也未完全厘清。来源2
原始报告与公开清单有差异,不能为了复现而改数字
2023年公开文件包含12,621条肌肉缺失记录,与主文总数一致。但按公开起止坐标计算,超过2 kb的记录有2,492条;用简单的终点减起点计算则为2,490条。作者代码中的相应计数为2,390,论文报告的100次“常见缺失样”事件占4.18%也对应这个分母。来源3 作者代码
长度范围也没有完全对齐:公开坐标中有零长度、低于100 bp,以及100—137 bp的记录,而主文描述的最小长度为138 bp。我们保留这些行和原坐标,记录差异,没有猜测缺失的中间文件,也没有重跑原始测序读段的比对和识别。
在预先说明的敏感性检查中,改用线性长度、只纳入参考范围内的端点,或剔除与报告长度范围冲突的记录,年龄关联方向没有改变。把37条零长度或低于100 bp的记录极端地都归入大缺失,方向也未改变;这项检查并不能覆盖所有潜在的识别错误。
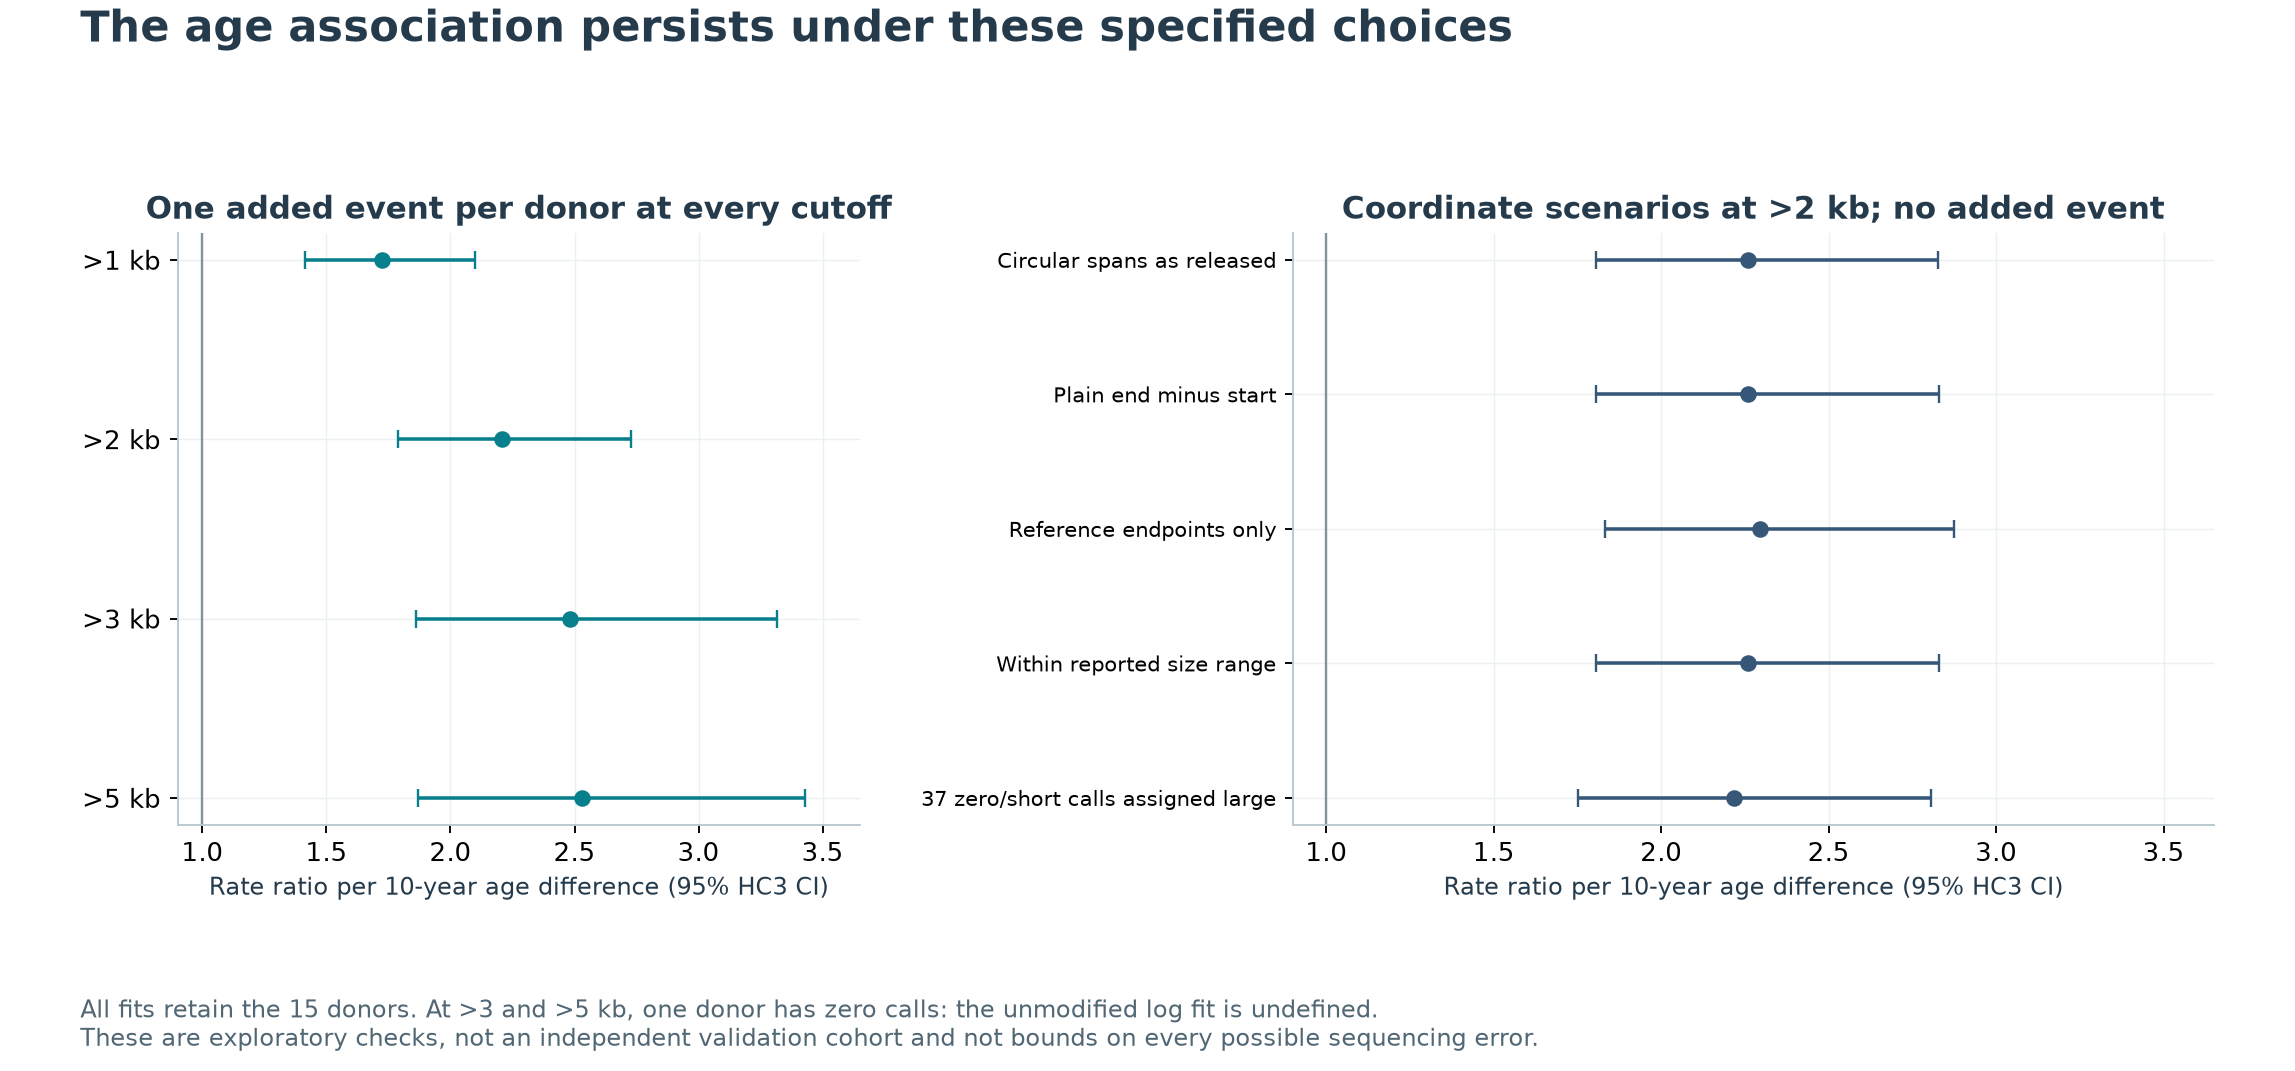
提高阈值到3或5 kb时,有一位供者没有符合条件的记录,直接取对数会失去定义。我们没有悄悄删掉这位供者,而是在所有阈值下统一展示“每位供者加1条”的敏感性分析,并保留未加伪计数模型无法估计的记录。
脑组织清单则只发布了224条已经过大缺失筛选的记录,不能拿来与论文的1,945条全长度范围记录直接比较。脑组织只有两组各3位供者,胎盘缺失清单也不在这份文件中,均不用于扩大肌肉分析的样本量。这些核查支持的是公开文件中年龄关联对指定分析选择的稳定性,不是对所有原始实验和检测准确性的重新认证。
相同的平均值,可以对应不同数量的高负担片段
接下来用一个条件模型,把“平均值为何不够”写清楚。把组织划分为等体积的小片段,设高负担片段占比为p,其缺失比例为h₁;其余片段的缺失比例为h₀;高负担片段的单位体积mtDNA拷贝密度是其他片段的r倍。理想、无偏检测得到的混合缺失比例为:
m = [p × r × h₁ + (1 − p) × h₀] / [p × r + (1 − p)]
这个m是理想分子比例,不能未经检测校准就把前面的“缺失事件数/读段数”直接代进去。长读段里可能有多个事件,检测本身还有覆盖偏差。
假设混合比例都是1%,会有以下不同情形:每个片段都是1%;约1.05%的片段达到95%、其余为零;或者高负担片段拷贝密度提高到三倍时,只需约0.35%的片段达到95%。若再假设90%是一个局部异常界限,这三种情形超过界限的片段数量就不同。
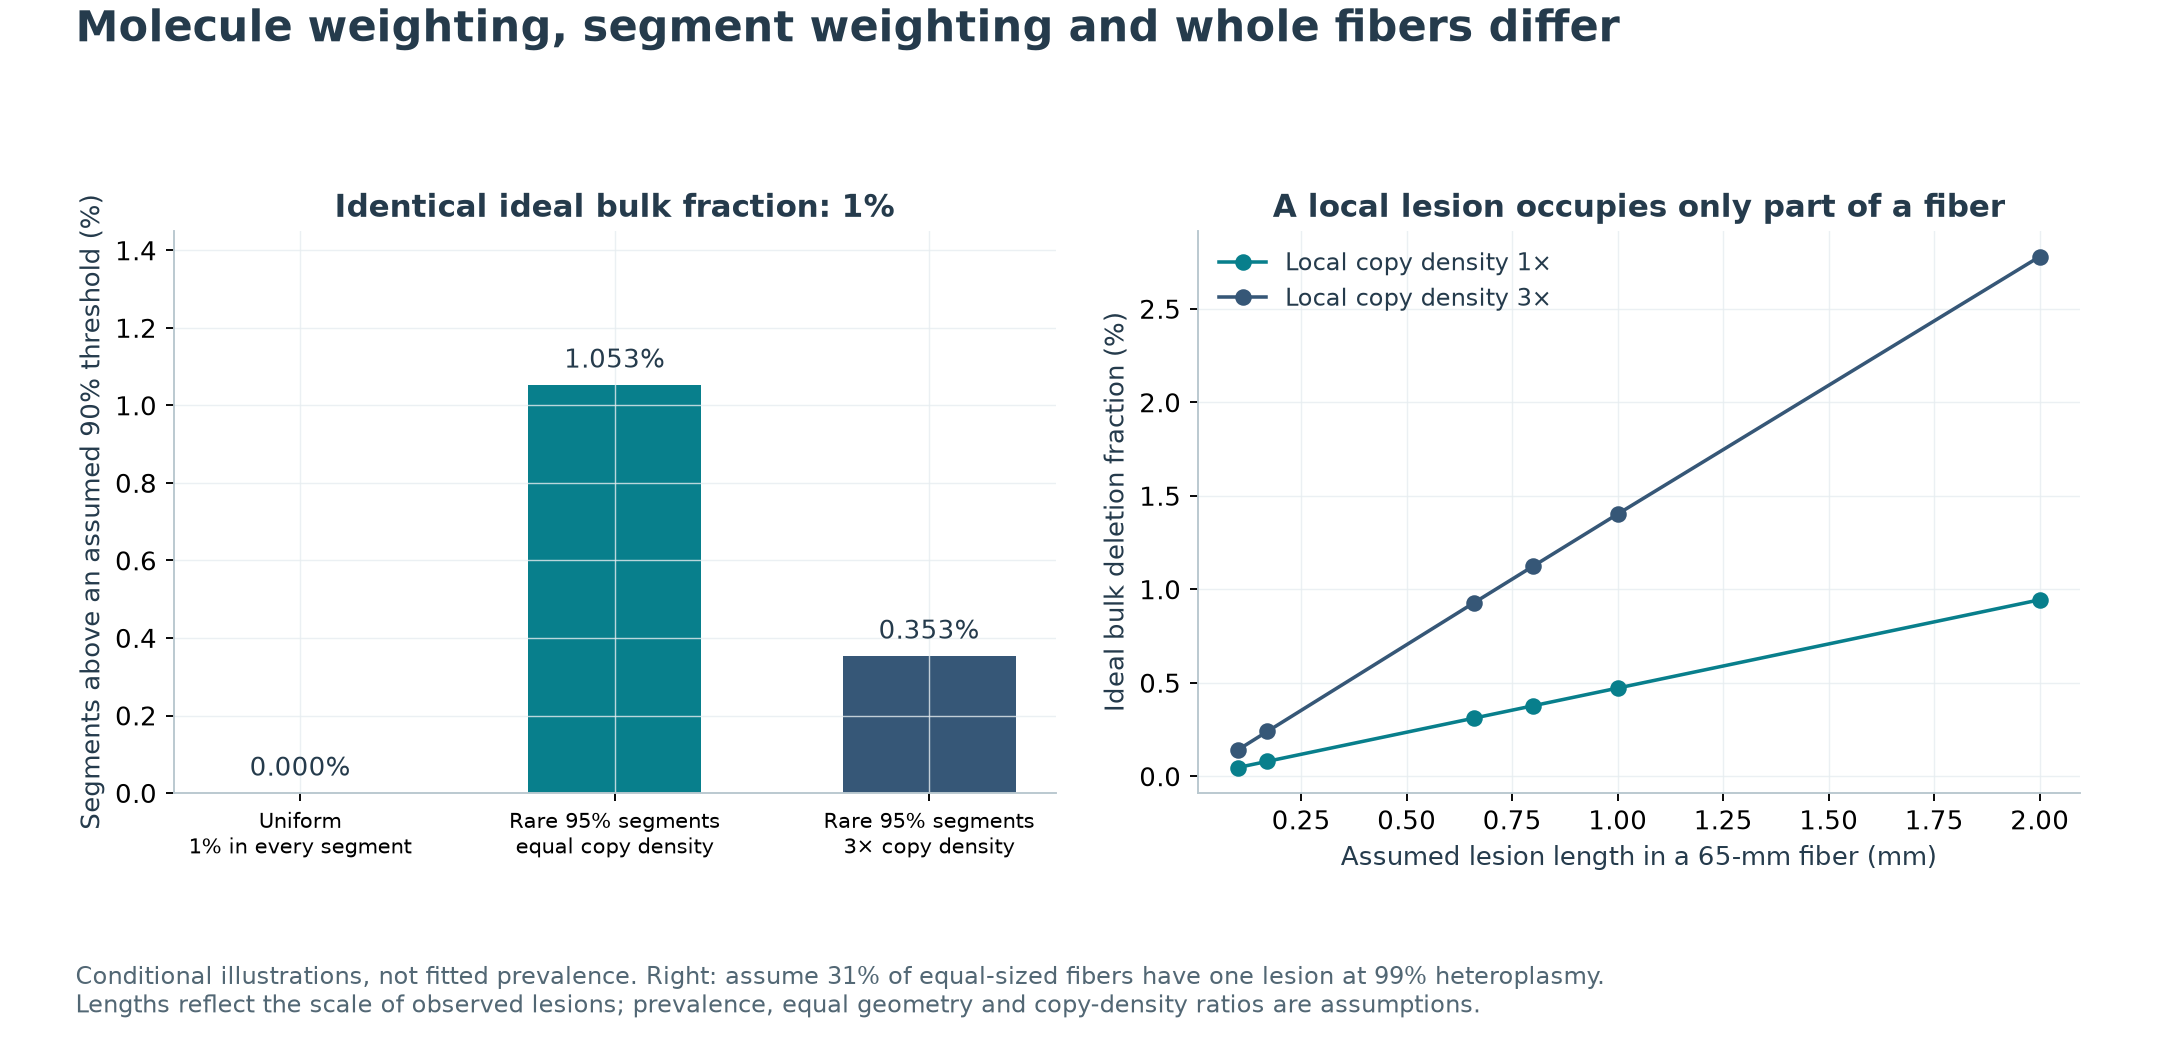
这些是数学上可核查的情景,不是人体患病率估计,也没有把90%认定为通用生物阈值。更实际的肌纤维还要加一层长度权重:一根65毫米的纤维里,1毫米的高负担病灶只占其长度的一小部分。图右假设31%的等尺寸纤维各有一处病灶,展示病灶长度和局部拷贝密度如何改变混合比例;31%在这里仍是假设情景,不能借模型变成已经直接测到的比例。
这个模型还有一层反向提醒:若局部增加的主要是缺失拷贝,组织总mtDNA升高也不一定代表功能储备增加。Bua研究中的异常片段就观察到了缺失拷贝的局部增多。来源1
阈值不只取决于缺失比例
设某个片段的总拷贝数为N,缺失比例为h,那么完整长度的拷贝数是N × (1 − h)。在90%的缺失比例下,N为1,000时剩100份,N为3,000时剩300份。比例相同,并不意味着剩余数量相同。
再假设功能需要至少K份有效拷贝,在N至少达到K时,才会得到一个简化界限h = 1 − K/N。它依赖总拷贝数和需求,不能单靠h决定。图中用同一个假设需求、不同总拷贝数,展示界限如何移动。
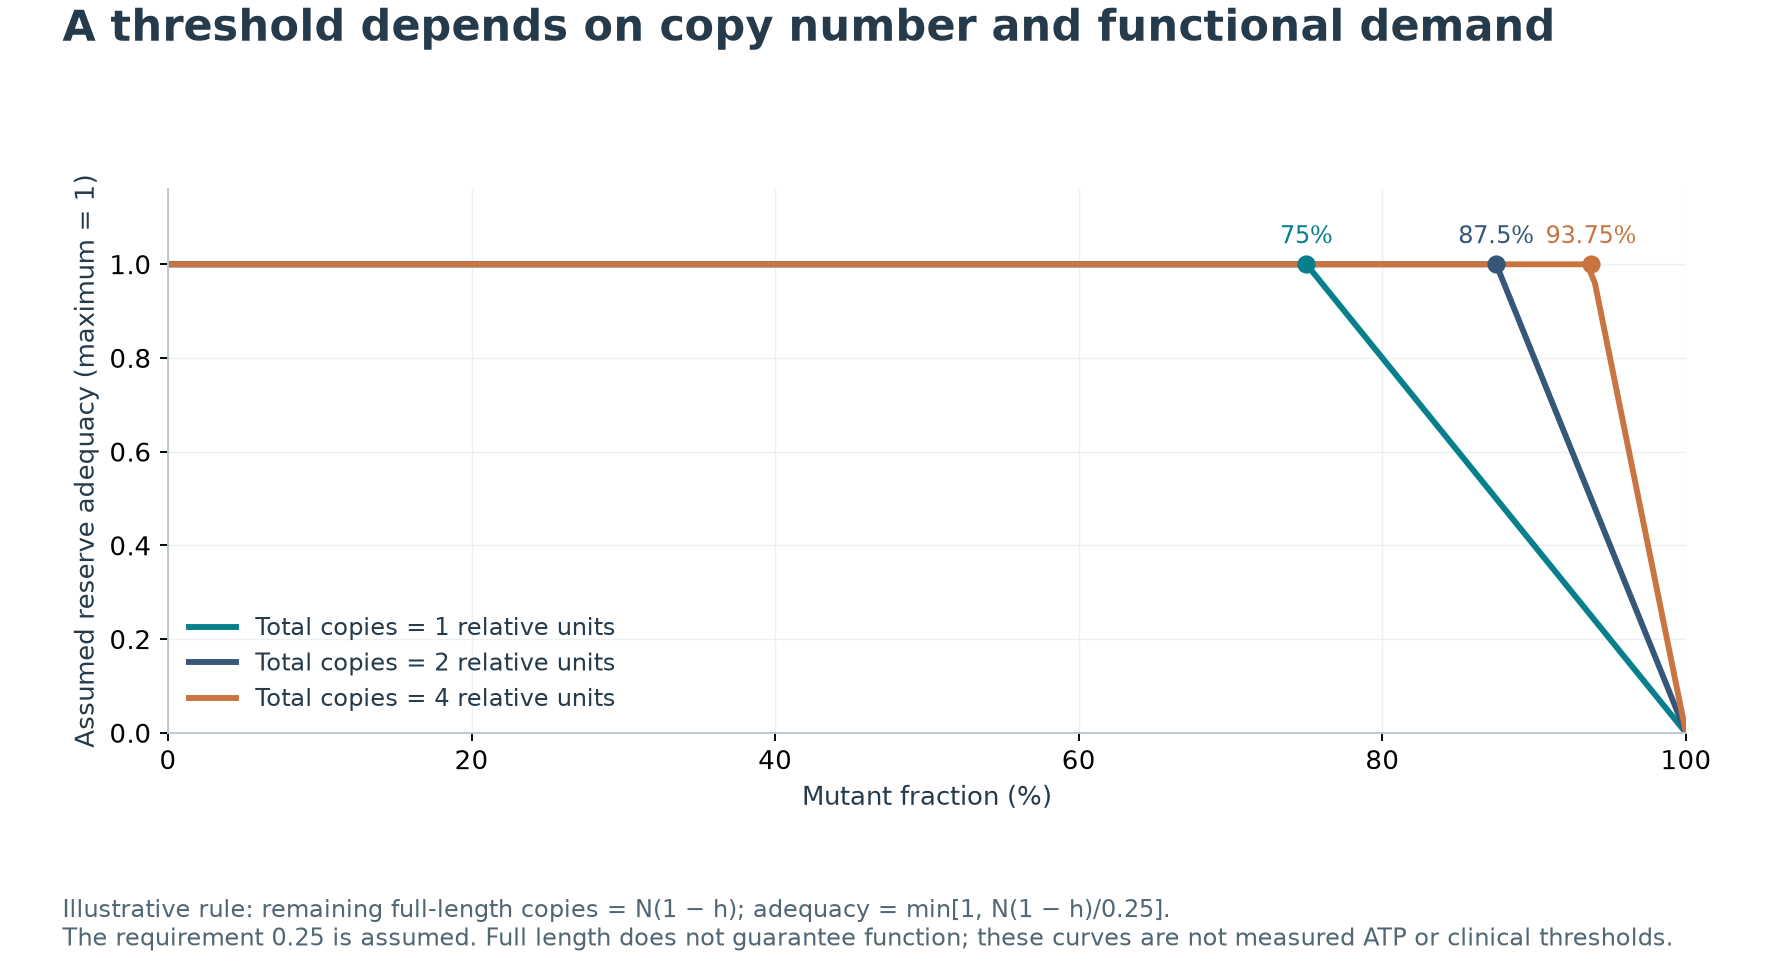
真实系统比这复杂:完整长度的DNA仍可能带有其他变异,表达、翻译、蛋白复合体装配、线粒体网络与局部需求都会影响功能。因此,这幅图不是ATP预测曲线,K也没有从人体数据拟合。它只说明,没有拷贝数、缺失性质和功能条件,不能把一个比例阈值当成普适诊断线。
缺失如何扩增,目前也不只有一种解释
“缺失DNA更短,所以一定复制更快”并不足以解释所有局部扩增。2022年Insalata等人的空间随机模型提出,较高的局部容纳密度、随机出生死亡和片段间交换,能够让缺失拷贝扩展,而不必直接赋予每个缺失拷贝更快的复制速率。空间随机模型
这是一种具体条件下的机制解释。其人体空间曲线部分来自既有单纤维研究,不能再算作新的人体重复;与某一种复制优势模型比较,也不能排除所有选择机制。
2026年Kowald与Kirkwood提出从跨年龄单细胞横断面资料推断扩增时间的方法,并在已知真值的模拟数据中验证。其模型可以检验参数在假设成立时能否恢复,但RNA推断DNA、复制优势、观察窗口和参数可识别性都需要条件。方法学研究
我们没有把这类模拟恢复的时间写成人体已经观察到的扩增速度,也没有拿15份组织平均样本去冒充单细胞年龄轨迹。区分新缺失的产生、已有克隆的扩增和受损片段的消失,需要更细的空间资料与能区分机制的扰动。
DNA读数改变,并不自动等于测得功能下降
2026年一项人体研究同时测量了肌肉mtDNA、呼吸和急性运动后的氧化还原变化。研究纳入12名年轻成人和10名较年长成人,均经过健康筛选。较年长组的mtDNA拷贝数较低、缺失频率较高,但基线呼吸测量没有检出明确组间差异;作者报告测得的最大ADP支持呼吸比较的p值为0.123。人体功能研究
这不是证明两组功能相等。样本量小,呼吸是在特定底物和ADP支持条件下测量,并未覆盖所有线粒体功能;整份活检的结果也无法排除局部病灶。
氧化还原分析只有15人。PRDX3变化与缺失频率的未调整相关较强,作者报告r=0.72、p=0.002;加入年龄后,该缺失项的p值变为0.151。候选蛋白还来自未作多重比较校正的探索性筛选,且没有独立验证。不能据此断言“缺失独立导致运动适应失败”,也不能由调整后不显著断言效应不存在。
该研究还只有一个运动后采样时间,较年长组的绝对运动负荷更低;它不是长期训练或延缓衰老的随机试验。这里最有价值的提醒是:DNA、局部酶染色、整块肌肉呼吸和运动表现,需要分别测量并建立连接。
这篇研究能支持到哪一步
| 结论层次 | 当前判断 |
|---|---|
| 局部损伤分布 | 人体选定异常肌纤维中,高缺失负担与局部呼吸链异常相对应;组织平均值可能掩盖这种集中分布 |
| 年龄与混合读数 | 小样本人群数据支持年龄关联;本次公开清单重分析在指定敏感性检查下方向稳定,源文件差异仍保留 |
| 功能阈值与总体影响 | 尚不能由混合缺失率确定异常细胞比例、肌肉功能下降幅度或寿命影响 |
| 干预 | 这些证据没有验证补充剂、增拷贝策略或其他干预能清除人体病灶并延寿 |
更能推进问题的研究,需要在同一组织中链接空间位置、缺失类型、绝对拷贝数与局部功能,再观察这些改变如何影响整体表现;研究扩增机制时,还应设计能区分不同模型的干预与时间序列。
平均值并非没有价值。它适合描述某种检测下的总体负担;要判断哪里坏了、坏到什么程度、是否影响整个人,就必须把分布和功能接回来。
数据与复算
下载数据摘录、统计分析、模型与五图复算包。包内保留供者表、公开缺失坐标的提取、来源差异、各项敏感性分析及模型假设,图表均由本文重新绘制。
本次重新解析原始XLSX的161个数值单元格及样本身份,核对全部12,845条公开缺失记录和48根选定纤维的表格提取,并用另一套R实现核对主要统计与模型计算。原始测序比对、人体实验和临床功能模型没有重新验证。具体读取范围、未取得材料、利益关系及同作者自审身份见下方研究记录。
适用范围与限制
- Codex同一agent完成研究、自审、翻译和编辑,不是独立人类专业复核。
- 单纤维是异常染色后选择,尸检人群有其他疾病;4条定量曲线仅2人,窗口计数仅3人。
- 公开坐标/长度与作者数字未完全对齐,原始FASTQ、切片及中间文件没有重建;敏感性不是穷尽性误差界限。
- 年龄主分析15男性供者且阈值在原研究同批选择;横断面不能代替个体速度或因果年龄效应。 自审后加入平均读长的探索性模型,不代表全部偏差校正。
- 2020/2023可能存在样本重叠;同一供者的两种检测不算独立人群重复。
- 事件/读段率、ddPCR捕获比例和理想无偏混合分子比例不同,模型不能直接给出异常细胞患病率。
- 空间与储备模型参数明确假设,完整长度DNA不保证功能;没有真实ATP或统一临床阈值拟合。
- 2022/2026扩增模型补充未完整读取或复算;合成数据验证非实际人体时间,既有空间曲线不能重复计数。
- 2026功能资料只有22人、redox15,未调整多重筛选,个体数据未得;不显著非等效,也不证明零效应。
参考来源
- Bua et al. Mitochondrial DNA-deletion mutations accumulate intracellularly to detrimental levels in aged human skeletal muscle fibers. American Journal of Human Genetics (2006)
primary human tissue study · 来源版本: 2006; doi:10.1086/507132
实际读取范围
相关章节
读组织/LCM/qPCR方法、局部对应与范围结果、表1/3/4及讨论。48选定纤维来自7人;定量空间仅4纤维/2人;2mm计数来自3人。重抽表3与计数,保留两个超出重复序列长度解释的尺寸差异;未重分割切片或数字化空间曲线。尸检疾病选择和65mm外推公开。
- Tissue, laser-capture and qPCR Methods
- Results: extent, colocalization and quantitative spatial profiles
- Tables 1, 3 and 4; Figure 4 and Discussion
- Herbst et al. Mitochondrial DNA deletion mutations increase exponentially with age in human skeletal muscle. Aging Clinical and Experimental Research (2020 online; 2021 issue)
primary assay study and supplement · 来源版本: 2020 online; PMC accepted manuscript plus publisher entry and DOCX supplement
实际读取范围
相关章节
读人体检测/年龄回归及讨论,核出版社摘要的14男性/98倍与PMC接受稿公式;补充DOCX实际为引物/探针和酶切验证,不是个体数据。每二倍体核拷贝数不当每纤维;98倍为回归推算,样本与2023重叠未厘清;未重拟合14人。
- Human assay methods and age-regression Results/Figures
- Discussion and funding/conflicts/data availability
- Supplementary Table1 and restriction-digest Figure1
- Vandiver et al. Nanopore sequencing identifies a higher frequency and expanded spectrum of mitochondrial DNA deletion mutations in human aging. Aging Cell (2023)
primary human sequencing study and released data · 来源版本: 2023; doi:10.1111/acel.13842; public supplementary files acquired2026-09-21
实际读取范围
相关章节
读主方法/结果/讨论及补图文字说明;实际提取23样本表和12845条位置记录。主分析15男性肌肉,范围26–81,均配对ddPCR;Brain224已筛选,不当1945全部记录。保留2492/2490与作者2390、长度范围差异。核CC-BY4.0及ONT专利披露;未重比对FASTQ、未做调用准确性验证。
- Main Methods/Results/Discussion and conflicts
- Supplementary Table1, DataS1 BED; supplement Figure1–5 captions
- Data availability: SRA PRJNA945898 and author repository
- Vandiver laboratory. Nanopore_Tissues: released analysis scripts
author code · 来源版本: commit c6feed75d11bded134d968602255eb098412ca9a,2022-12-01; predates2023 paper
实际读取范围
相关章节
读相关肌肉阈值/伪计数、脑导出和位置导出代码。作者2390及common窗口可定位;中间CSV未提供,版本早于发表。发现坐标转换代码的条件重评风险,但未证明对应已发BED,未据此修复原记录。未执行作者完整流水线,代码只作私有原件保存。
- DelCalling_Muscle_SupplementalAlignments.r: filtering, threshold scans and combined counts
- BreakpointDensities .r: input files, endpoint construction and BED export
- DelCalling_Brain.r: combined calls, pseudocount and >2kb export filter
- Insalata et al. Stochastic survival of the densest and mitochondrial DNA clonal expansion in aging. PNAS (2022)
mechanistic modeling study · 来源版本: 2022-11-28; doi:10.1073/pnas.2122073119
实际读取范围
相关章节
读最小模型、空间曲线比较、讨论和主方法;密度/随机/空间三条件,比较特定复制优势模型。人体曲线复用Bua资料,不当独立人体队列;速度来自截面猕猴资料和模型解释。未读完整SI或运行作者模拟,不采用补剂干预推论。文件名2023不代表发表年,实际2022。
- Abstract and minimal stochastic/deterministic model
- SSD Matches Clonal Expansion in Muscles
- Discussion and main Materials and Methods
- Kowald and Kirkwood. Inferring accumulation times of mitochondrial DNA deletion mutants from cross-sectional single-cell data: methodological framework and validation. npj Aging (2026)
methodological modeling study · 来源版本: 2026-06-16; doi:10.1038/s41514-026-00431-4
实际读取范围
相关章节
读摘要、相关框架/模拟/Moran与讨论段;验证在已知参数模拟数据上进行,不能当人体扩增时间实测。RNA-DNA需模型桥接,fracAdv边界可识别性与三年截断保留;同伴实验稿另行提交。未读全部数学附录或重跑GitLab代码。
- Abstract; cross-sectional/scRNAseq framework
- Selected synthetic-data and Moran-process passages
- Discussion: identifiability, transcript/genome bias and simulation truncation; code availability
- Ruple et al. Aged Mitochondrial DNA Is Associated With Aberrant Acute Exercise-Induced Redox Responses in Human Skeletal Muscle. Aging Cell (2026)
primary human observational study · 来源版本: 2026-08-20; doi:10.1111/acel.70678
实际读取范围
相关章节
核22参与者与15人redox子集、呼吸条件、运动强度、PRDX3年龄调整及未校正多重筛选。最大呼吸p.123非等效;r.72/p.002与年龄调整p.151分开。完整个体功能/mtDNA表未得,未重新拟合;3份蛋白组XLSX已下载但未作数值分析,不冒称已复现。
- Abstract; Methods2.1–2.11
- Results3.1 and3.6 and figure captions
- Discussion4.1–4.3; Limitations5; conflicts and data availability
作者与实际审阅
作者自审 · Codex (AI agent)
2026-09-21 · Codex同一作者自审:核人体供者/纤维/片段分母、2mm与65mm外推、48选定纤维与4条定量空间曲线、ddPCR/事件读段/理想分子比例。保留公开长度和计数差异,未改原数据凑结果;15供者HC3/阈值/坐标/LOO与自审后读长诊断分层。补等体积和N≥K条件;2022/2026机制模型限实际读取,2026呼吸非等效、年龄调整与多重性明确。161源数值、92身份/年龄字段、12845位置和48纤维核对;1547项R数值与96混合检验通过,26输出空目录及公开ZIP重放字节一致。两语逐段核数值、否定、单位、假设、五图及元数据。修订后科学/发布准备自评9.05;非独立人类专业审核,实际网页和发布验收另记。
仍有限制:
- Codex同一agent完成研究、自审、翻译和编辑,不是独立人类专业复核。
- 单纤维是异常染色后选择,尸检人群有其他疾病;4条定量曲线仅2人,窗口计数仅3人。
- 公开坐标/长度与作者数字未完全对齐,原始FASTQ、切片及中间文件没有重建;敏感性不是穷尽性误差界限。
- 年龄主分析15男性供者且阈值在原研究同批选择;横断面不能代替个体速度或因果年龄效应。 自审后加入平均读长的探索性模型,不代表全部偏差校正。
- 2020/2023可能存在样本重叠;同一供者的两种检测不算独立人群重复。
- 事件/读段率、ddPCR捕获比例和理想无偏混合分子比例不同,模型不能直接给出异常细胞患病率。
- 空间与储备模型参数明确假设,完整长度DNA不保证功能;没有真实ATP或统一临床阈值拟合。
- 2022/2026扩增模型补充未完整读取或复算;合成数据验证非实际人体时间,既有空间曲线不能重复计数。
- 2026功能资料只有22人、redox15,未调整多重筛选,个体数据未得;不显著非等效,也不证明零效应。
编辑签发 · Codex (AI agent)
2026-09-21 · Codex同一作者自审:核人体供者/纤维/片段分母、2mm与65mm外推、48选定纤维与4条定量空间曲线、ddPCR/事件读段/理想分子比例。保留公开长度和计数差异,未改原数据凑结果;15供者HC3/阈值/坐标/LOO与自审后读长诊断分层。补等体积和N≥K条件;2022/2026机制模型限实际读取,2026呼吸非等效、年龄调整与多重性明确。161源数值、92身份/年龄字段、12845位置和48纤维核对;1547项R数值与96混合检验通过,26输出空目录及公开ZIP重放字节一致。两语逐段核数值、否定、单位、假设、五图及元数据。修订后科学/发布准备自评9.05;非独立人类专业审核,实际网页和发布验收另记。
资助与利益关系
本任务无相关产品推广或企业资助;同一Codex agent承担研究、自审、翻译与编辑。
所引研究的资助
Bua报告NIH支持;Herbst报告NIA/NIH支持及无冲突;Vandiver报告NIH/基金会/VA支持,Timp两项专利已授权Oxford Nanopore Technologies。Insalata报告Leverhulme/EPSRC及奖学金支持并声明无竞争利益;Ruple声明无利益冲突。未逐一核验所有其他资助/商业关系,不能推定未核部分不存在;利益披露不替代方法判断。