先说我们得到的答案
目前最有依据的表述是:某些干预能够改变某些衰老相关的甲基化指标;仅凭读数回拨,尚不能确定改变了哪一层生物学过程,更不能换算成多活几年。 这既不等于时钟毫无意义,也不等于所有下降都是测量误差。
本篇的三项计算各回答一个问题:
| 我们做了什么 | 得到了什么 | 没有回答什么 |
|---|---|---|
| 重算 CALERIE 的公开检测读数 | DunedinPACE 的组间差异方向与论文相近;简化分析的不确定区间更宽 | 没有参与者编号和协变量,不能完整复现作者的纵向模型 |
| 固定真实分选细胞甲基化谱,改变混合比例 | 设定的 10 个百分点比例转移,让 Hannum 读数下降 0.72–3.47 岁 | 这不是人体干预效果,也不是 CALERIE 变化的归因 |
| 模拟无干预时的噪声和多指标检验 | 选择基线高值者、事后挑选时钟,都可能产生看似积极的结果 | 模拟参数没有校准为某家商业检测的性能 |
范围限定为人类血液 DNA 甲基化测量。不比较商业检测品牌,不评定所有抗衰干预,也不把血液读数推广为脑、肌肉等每个器官的年龄。
一管血中的“年龄”,其实是一个模型输出
DNA 甲基化是 DNA 上的一类化学标记。检测得到各位点的甲基化比例,时钟算法再把许多位点的信息压缩成一个数。这个数的意义取决于训练时让算法预测什么。
| 类别与例子 | 训练时主要对准的对象 | 解释时容易跨过的边界 |
|---|---|---|
| 年龄预测型:Hannum、Horvath | 出生以来经过的年龄 | 预测日历年龄很准,不等于识别了全部衰老损伤 |
| 风险相关型:PhenoAge、GrimAge | 与死亡风险有关的临床表型、蛋白代理量等 | 风险关联不能直接变成“把数字降低就会获益” |
| 速度相关型:DunedinPACE | 同一出生队列多年、多系统生理变化 | 一次血样估计的是训练出来的速度代理量,不是直接观察未来一年 |
DunedinPACE 的开发使用了同一队列从 26 到 45 岁的四次评估、19 项生理指标;输出以参考群体的衰老速度为尺度。它与以“岁”表示的年龄时钟不是同一种量,不能把 0.02 的变化写成“年轻了 0.02 岁”。PC PhenoAge、PC GrimAge 则是使用主成分改进技术稳定性的版本,不能与原始版本不加区分地混用。DunedinPACE 原始研究 CALERIE 方法及补充表 S2
需要区分四道证据门槛:重复检测是否稳定;是否预测后续健康;干预是否改变读数;干预造成的读数变化,是否可靠地预示临床获益。前面三道通过,并不会自动通过第四道。替代终点的定义与验证
机制模型:细胞没变年轻,血液时钟也能变化吗?
血液混合了中性粒细胞、T 细胞、B 细胞等群体。分选实验表明,即使来自同一个人,不同血细胞的甲基化谱也明显不同。Reinius 等的分选实验
用一个最小模型表示这个事实。设 pₖ 为第 k 类细胞贡献的 DNA 比例,mⱼₖ 为该类细胞在第 j 个位点的甲基化比例。近似认为混合血样的 βⱼ = Σₖ pₖmⱼₖ。对固定权重的线性时钟,C = b + Σⱼ wⱼβⱼ。那么一次变化可拆为:
ΔC = Σⱼₖ wⱼ mⱼₖ Δpₖ        细胞组成变化
   + Σⱼₖ wⱼ pₖ Δmⱼₖ        细胞内甲基化变化
   + Σⱼₖ wⱼ Δpₖ Δmⱼₖ       两者共同变化的交互项
这是一条在假设下成立的代数分解,不是对人体衰老的完整理论。它给出一个可检验预期:如果细胞组成确实参与改变读数,那么在固定细胞谱的计算混合物中,单独改变比例就应让时钟移动。
我们取 GSE35069 六位成年男性供者的中性粒细胞与 CD8 T 细胞数据,应用 methylCIPHER 提供的全部 71 个 Hannum 标记及权重。这 12 个分选样本在所需标记上没有缺失,因此主情景没有插补。把两类细胞的 DNA 混合比例从 80:20 改为 70:30,其余保持不变,六位供者的结果如下。公开数据 算法与许可
| 供者 | 仅由设定的混合变化产生的 Hannum 变化 |
|---|---|
| 1 | −0.72 岁 |
| 2 | −2.62 岁 |
| 3 | −2.81 岁 |
| 4 | −3.47 岁 |
| 5 | −2.96 岁 |
| 6 | −1.34 岁 |
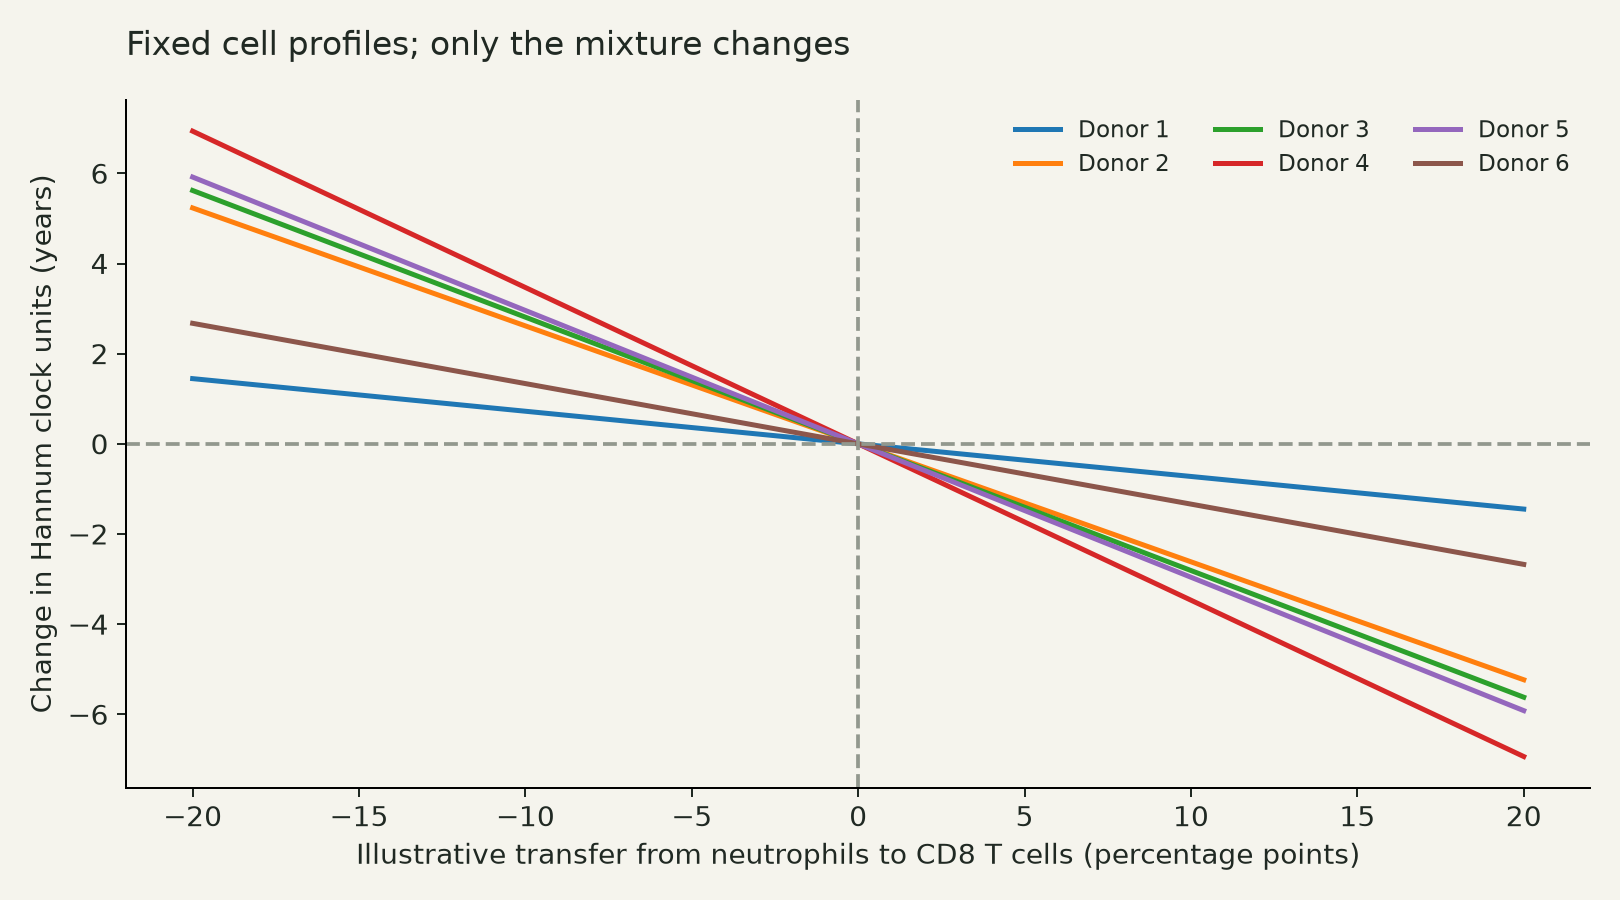
图中横轴是设定的 DNA 比例转移,纵轴是时钟单位;各条线来自不同供者。我们另外计算了其他标记完整的细胞对,共 228 个供者—有向细胞对组合,结果随细胞类型而改变,不能把上述方向当成普遍定律。主情景结果 · 其他细胞对
这里有三个重要限制。第一,10 个百分点是人为设定,未从某项干预中估计。第二,线性混合的是 DNA 贡献比例;实验纯度、不同细胞的 DNA 贡献以及芯片预处理,都可能让真实混合样本偏离这一近似。第三,Hannum 的数值在分选细胞上并不等于这些细胞有可直接比较的真实年龄。
还有一个更深的限制:同一个时钟变化,可能由不同机制产生。 我们在计算中又构造了一组保持细胞比例不变、轻微改变细胞内甲基化的向量,也能产生完全相同的时钟变化;所有甲基化值仍在 0–1 内。它证明的是这个单一输出不足以唯一识别输入变化,不证明现实中的变化一定来自哪条路径。区分路径需要同期细胞计数、分选或单细胞测量,以及与功能结局相连接的实验。
细胞组成变化本身可能是有益或有害的生物学变化。例如,治疗改变免疫细胞群体,可能正是作用路径的一部分。因此“调整细胞比例后是否仍有效”与“干预的总体效应是什么”不是完全相同的问题。直接调整干预后的中介量,也不自动得到无偏的细胞内直接效应。
人体案例:我们重算了 CALERIE 的什么?
CALERIE 将 220 名无肥胖的健康成年人随机分到热量限制干预或自由饮食对照,观察两年。本文讨论的甲基化分析是试验完成后的分析,不是最初注册的主要终点;具有基线及至少一次随访甲基化资料的分析人群为 197 人。论文对 DunedinPACE 报告了较小的下降,对 PC PhenoAge、PC GrimAge 未发现明确组间差异。论文 注册记录
我们实际取得了公开 CSV 和补充 PDF,而不是全试验的原始芯片数据。CSV 中有 580 行,7 行没有时钟值,余下 573 次检测:基线 197 次、12 个月 191 次、24 个月 185 次。两个公开 CSV 的共有时钟值逐行一致。补充表 S1 的文字说明把 12 个月对照人数写为 65,而数据文件与主文图 1 都是 66;我们保留实际文件的 66 人,没有人为删行。公开数据与补充材料 CSV 获取入口
文件没有参与者编号、年龄、性别、研究中心或细胞比例。 即使行序看起来像按人排列,也不足以证明配对关系。因此我们只计算每个随访时点的干预组减对照组均值差,采用 Welch 方法和双侧 95% 置信区间,不声称完成了配对变化、基线调整或细胞机制的原数据复现。
| 随访 | 本次重算:DunedinPACE 均值差〔95% 区间〕 | 原论文调整后差异:标准化单位〔95% 区间〕 |
|---|---|---|
| 12 个月;125 对 66 人 | −0.024〔−0.049,0.001〕 | −0.29〔−0.45,−0.13〕 |
| 24 个月;117 对 68 人 | −0.021〔−0.045,0.004〕 | −0.25〔−0.41,−0.09〕 |
右栏来自原论文补充表 S4,是作者的结果,不是我们的重算;两栏单位不同。用作者给出的舍入后基线标准差 0.09 换算,右栏点估计约为 −0.026 和 −0.023 个 DunedinPACE 单位,方向和量级与左栏相近。全部计算结果
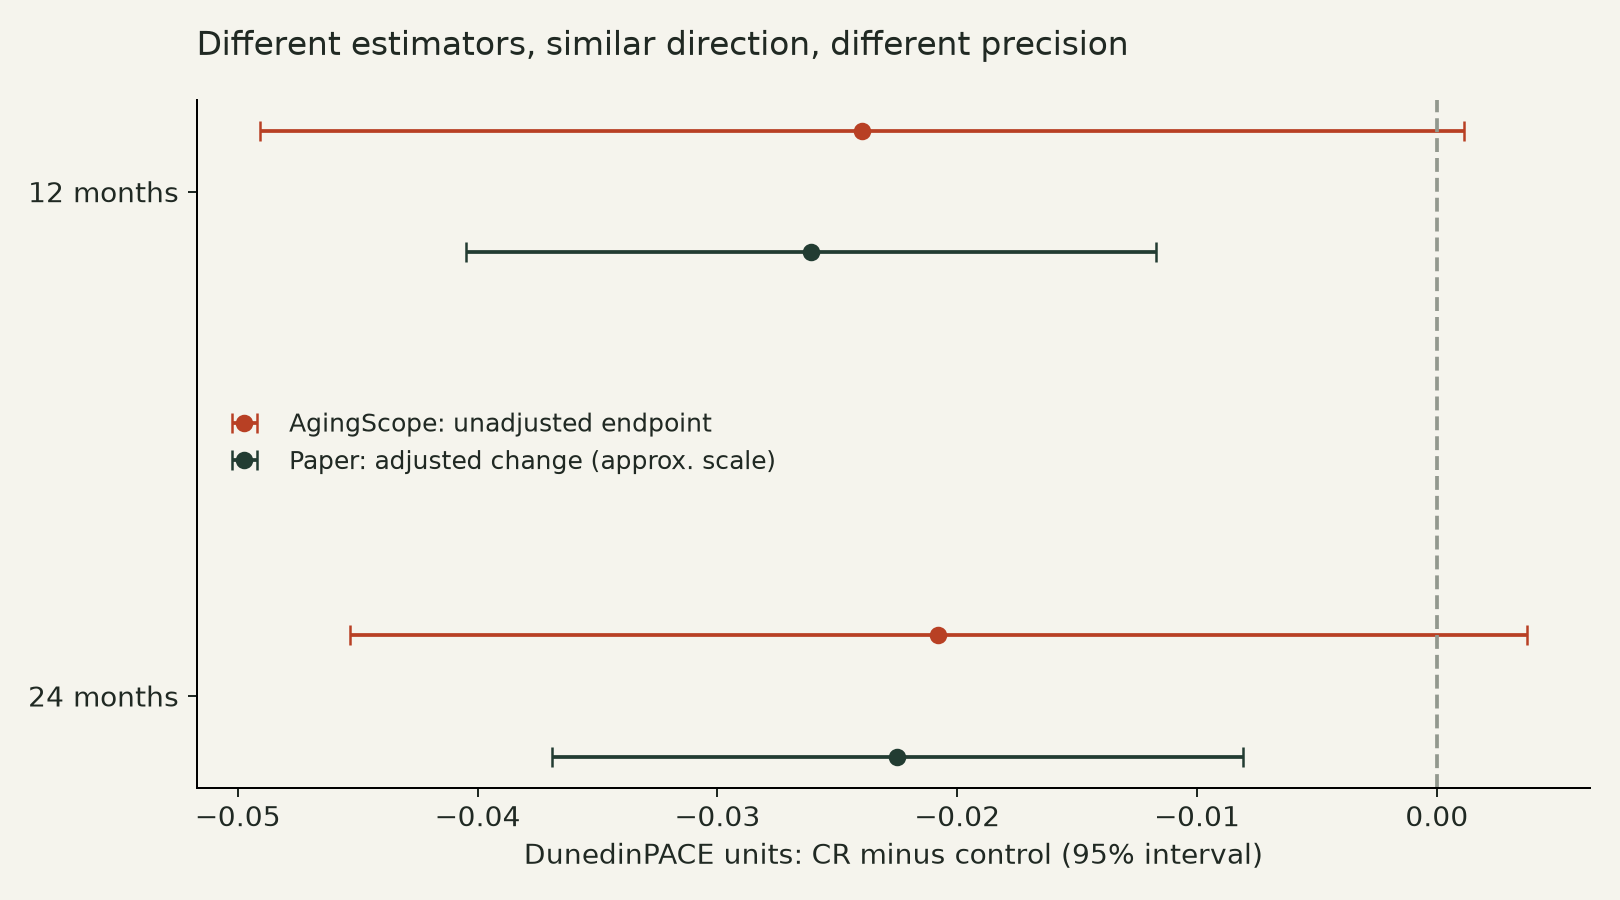
我们的区间跨零,不构成对原论文的反证。 原模型利用基线、协变量和重复测量;本次分析舍弃了这些信息,估计方法与精度都不同。随机分组支持组间比较,但只分析有随访值者仍依赖缺失机制,不能称为完整意向治疗复现。我们将三个主要时钟乘两个随访组成六项检验,另导出全部 11 个时钟的 22 项检验,并分别做 Holm 校正,未把最小 P 值挑出来充当主发现。
相反,组内变化更不能替代组间差异。补充表 S3 中,24 个月 PC GrimAge 的年龄差值在对照和干预两组都下降;S4 的调整后组间差异却接近零。如果只摘录干预组的下降,就会丢掉对照提供的解释。这也提醒我们:年龄差值的下降不必等于时钟原始年龄倒退。补充表 S3–S4
失访要有多不同,才会改变描述?
我们做了一个透明的敏感性计算。以所有随机分组者 145 对 75 人为分母,24 个月公开读数缺少 28 名干预组、7 名对照组参与者。假设缺失对照者的均值与已观察对照相同,那么缺失干预者的平均 DunedinPACE 比已观察干预者高约 0.108,就足以使未调整的全组点差异归零。如果只以 197 人甲基化分析队列为分母,对应值约为 0.242。敏感性计算表
这不是说缺失者实际如此,也不是对作者调整后模型的敏感性检验;它展示的是不同分母、不同缺失假设会怎样改变我们这个简化估计。没有缺失者的结果,不能从现有文件判断哪种假设更接近事实。
能不能把这一变化都归因于细胞组成?
不能。原论文补充表 S6 在加入估计细胞计数的变化后,DunedinPACE 的效应仍为负,点估计与未作该调整时相近。这反对“全部只是这些细胞比例变化”的简单解释;但估计细胞数有误差,调整也不覆盖所有亚群,更不是直接测量细胞内过程。我们的 Hannum 混合演示不能用来抹去这一反证,也不能量化 CALERIE 中 DunedinPACE 的组成贡献。补充表 S6
两种容易制造“回拨”的统计情景
第一种是挑选基线异常高的人再测一次。设一个稳定的潜在分数标准差为 2,单次独立检测误差标准差也为 2,二者都是我们设定的示意参数。对 40 万个没有真实变化的模拟对象,只选第一次读数最高的 10%,第二次平均就下降约 2.49 个单位;正态模型的解析期望是 2.48。不是他们都被治好了,而是第一次被选中时包含了偏高的随机误差。
如果重复检测的标准差是 σ,两次独立误差之差的标准差为 √2σ;每个时间点平均 r 次独立技术重复后,误差部分降为 √(2/r)σ。这不包含真实短期生理波动,也无法消除共用批次造成的偏差。年龄预测误差,比如模型预测日历年龄的平均偏差,不能直接拿来代替这里的检测误差。
第二种是同时算很多时钟,再挑显著的那个。在全部没有真实效应的模拟中,对 16 个双侧检验都使用 P<0.05,不校正时,“至少出现一个任一方向假阳性”的概率如下:
| 检验统计量之间的相关性 | 模拟的至少一个假阳性概率 |
|---|---|
| 0 | 56.0% |
| 0.5 | 37.3% |
| 0.9 | 14.6% |
| 1.0,完全相同 | 5.0% |
每个情景模拟 20 万次,最大 Monte Carlo 标准误约 0.11 个百分点。独立情景的解析值 1−0.95¹⁶ = 56.0% 与模拟一致。这里展示的是高斯等相关情景,不是现实 16 个时钟的假阳性率估计。
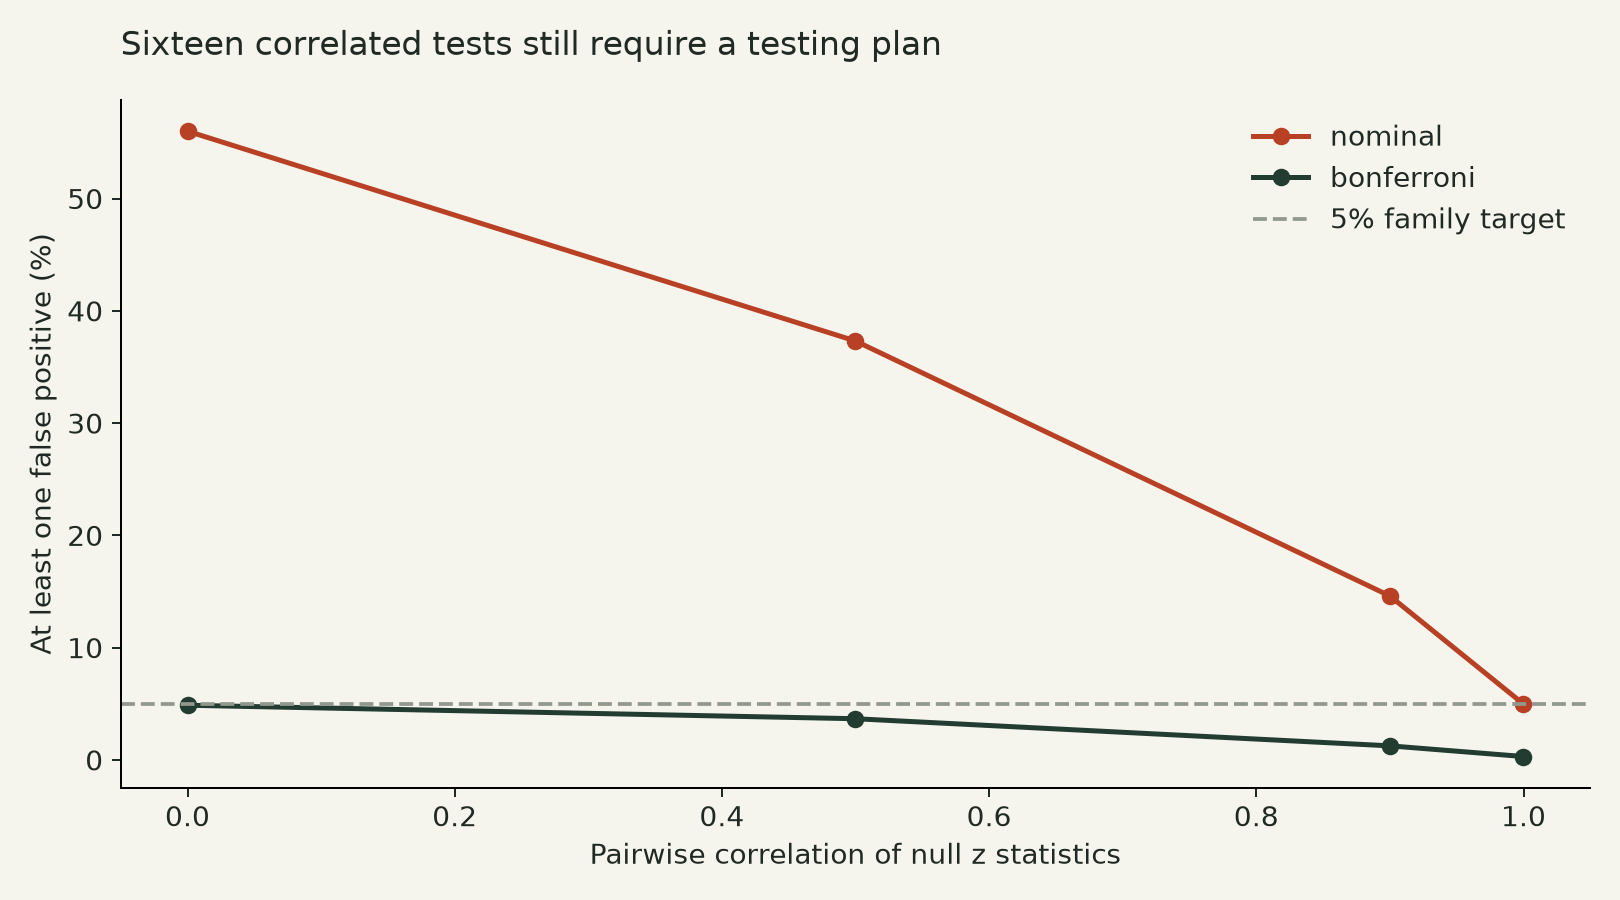
相关性确实减少部分冗余,但不能自动把多项检验变成一项。Bonferroni 的错误率上界来自概率的并集界,并不要求独立;高度相关时它可能保守。多重校正、预先限定主要时钟、报告全部结果和独立研究重复,分别解决不同问题。模拟结果与误差
提高重复性也有实际价值。在另一个明确设定的情景中,每组 50 人、真实组间变化差 0.5、个体生物变化标准差 1、单次检测噪声标准差 2,每时间点从一次检测增加到四次独立重复,已知方差双侧检验的理论功效由 13.3% 增至 30.3%。模拟与解析计算相符;这只是说明降低噪声的收益,不是给真实试验的样本量建议。完整参数与结果
最新证据有没有把缺口补上?
2026 年 8 月,Sehgal 等汇集 51 项公开或私有的纵向干预研究,比较 16 个时钟及其他甲基化指标,报告较可靠的第二代及速度指标往往更有响应性。该工作扩大了响应模式的地图;其中核心分析包含干预前后比较,不能把跨研究的响应排序当成随机对照的疗效排名。多个时钟共享样本或信号,也不能算成多项独立临床重复。作者的细胞比例调整后仍有响应的结果,同样值得保留。Sehgal 等,2026
另一项 2026 年 InCHIANTI 研究纳入 699 人,发现部分时钟的纵向变化在结合基线后与死亡风险相关。这比只看一次基线更接近“变化是否有意义”的问题。但它仍是观察研究;自然发生的变化与干预造成的变化,未必具有同样的因果含义。它增强了继续验证的理由,没有单独完成替代终点验证。Kuo 等,2026
因此,不能再简单说“所有时钟变化都没有健康信息”;也不能说“已经能用变化量结算延寿收益”。我们需要的是特定人群、特定干预和特定时钟之间的桥梁:预先规定的读数变化,是否在多个适当设计的试验中可靠预测功能、疾病或生存获益;有没有读数改善但伤害增加的反例。替代终点验证
怎样的下一项实验,能让判断更进一步?
对于细胞机制,最有区分力的设计是在随机对照框架中,同时采集总血甲基化、细胞计数和关键分选亚群:先报告总效应,再把组成贡献与细胞内变化作为另外的问题检验,而不是默认把其中之一当作噪声。
对于测量,应把同一人的样本在检测批次中合理分配,保留盲态技术重复,报告绝对重复差异,而不仅是相关系数。高相关可能来自参与者之间年龄跨度很大,仍不保证一个人的小变化可靠。
对于健康意义,应预先指定少量主要指标,保留完整的阴性结果,追踪干预停止后的持续性和实际功能、疾病及安全结局。只有在这些桥梁逐步建立后,时钟才可能承担更强的解释任务。
CALERIE 的安全报告提醒我们,指标方向不能代替整体利弊判断:试验有营养和安全监测,报告了骨密度下降,以及因持续血细胞比容下降或过度骨丢失而停止干预的参与者。本文没有评估热量限制对个人是否合适,不从时钟结果生成节食方案。安全报告
研究说明、复算与更新
这是一次有明确范围的证据研究和探索性计算,不是系统综述,也没有做新的湿实验。检索截止 2026-09-17,结合出版商、PubMed/Europe PMC、GEO、原论文补充材料和 ClinicalTrials.gov,追索随机试验、反证、方法与近期进展。未取得 CALERIE 全部可链接个体数据,没有重跑 51 项研究,也未验证商业检测服务。
下载复算包:包含程序、固定依赖、输入网址与哈希、Hannum 权重和相应许可、分析决策及输出说明。程序从公开仓库获取原始输入;不随包分发参与者级数据或论文全文。机器可读结果
计算分开标注:CALERIE 是已发表的处理后检测值重分析;细胞混合是实测参考谱加设定比例的计算实验;噪声、多重检验与功效是合成数据模拟。独立公式、边界情景、两份数据导出的相符性和固定随机种子用于核查实现,不构成新的实验验证。
本篇更新长寿派原《表观遗传时钟》:保留测量与预测的基本问题,收窄“真实年龄”和临床价值的确定性措辞,补入组间统计、机制计算和 2026 年证据。原文中的干预排名与个体检测建议不在本次结论范围内。首次公开此版本:2026-09-17;下次计划检索复核:2027-03-17;重大试验、更正或取得可链接数据时提前更新。
作者、计算、译文核对及编辑均由同一 Codex AI agent 完成,没有独立 agent、人类或临床专业审阅。逐条来源的实际读取范围、研究利益关系与剩余限制见下方记录。
探索细胞混合与噪声模型。交互只用于理解设定情景,不接收或预测个人健康数据。
模型探索
改变假设,观察读数。
实测细胞谱与设定比例构成的演示,不预测个人年龄或干预收益。
起始比例 80:20,细胞内甲基化谱保持不变。
Hannum 岁
变化量中误差的标准差:
√(2 / 重复数) × 标准差。仅含独立误差,不含共同批次偏差或真实生理波动;噪声参数未按这些供者或商业检测校准。
JavaScript 未启用;完整情景结果与假设仍可阅读上文表格和下载文件。
适用范围与限制
- 本篇是目标检索和探索性计算,不是系统综述或独立临床试验。
- CALERIE公开导出没有可靠个体编号或协变量;本次未调整端点估计不是原纵向模型完整复现。
- 组成模型仅用六位男性供者及固定线性算法;设定比例不是实测干预变化,不用于解释CALERIE效应份额。
- 噪声模拟为合成参数;没有商业检测或个体诊断效能评估。
- 同一AI agent完成作者、自审、翻译核对与编辑,没有独立或临床专业审阅。
参考来源
- Waziry et al. Effect of long-term caloric restriction on DNA methylation measures of biological aging in healthy adults from the CALERIE trial
原始研究 · 来源版本: 2023; PMC version retrieved 2026-09-17
实际读取范围
相关章节
核读结果、样本流程、检测处理、ITT/TOT模型、限制和利益声明;补充材料另列;未重跑原个体数据模型。
- Fig. 1; Results; Methods: DNAm data and Analysis; Discussion; Competing interests
- CALERIE Supplementary Information: Tables S1–S10 and figures
原始研究 · 来源版本: 43587_2022_357_MOESM1_ESM.pdf
实际读取范围
相关章节
核读S1–S6:分母、技术ICC与随访稳定性、标准化变化、调整效应、细胞计数调整。S1的12个月AL人数注释与CSV/主图不一致。
- PDF pages 2–10: Tables S1–S6
- CALERIE public source-data and supplementary-data exports
公开数据 · 来源版本: Retrieved 2026-09-17; input SHA-256 in reproduction package
实际读取范围
相关章节
核查全部CSV字段和缺失;计算MOESM3/5并比较共有读数。580行中573行有时钟值;无参与者ID。
- MOESM3/MOESM5 CSV headers and all analysis rows; MOESM4/MOESM6 model summaries
- Reinius et al. Differential DNA methylation in purified human blood cells
原始研究 · 来源版本: 2012; Europe PMC XML
实际读取范围
相关章节
核读六位男性供者设计、分选结果、纯度及检测处理;不是代表性人群。
- Results: DNA methylation of blood cell populations; Methods: participants, purification, methylation analysis
- GSE35069: purified human blood-cell methylation profiles
公开数据 · 来源版本: GEO processed matrix downloaded 2026-09-17
实际读取范围
相关章节
核查样本元数据并抽取71个标记(含ch.*);主情景中性粒/CD8完整;其他细胞对的缺失明确排除。
- Series/sample metadata; 71 selected marker rows across 60 samples
- HigginsChenLab methylCIPHER: Hannum implementation and coefficients
算法 · 来源版本: Commit bfe5d02817e7dd5e923e8bf96528d5bfd52e1636
实际读取范围
相关章节
读取Hannum程序、全部权重和BSD许可;固定提交文件字节核验;独立实现加权和,不重训。
- R/calcHannum.R; data/Hannum_CpGs.rda; LICENSE
- Belsky et al. DunedinPACE, a DNA methylation biomarker of the pace of aging
原始研究 · 来源版本: 2022; Europe PMC XML
实际读取范围
相关章节
核读训练目标、重复性、外部验证及限制;没有重算该CpG算法或验证商业服务。
- Results: developing DunedinPACE and test-retest reliability; Discussion: limitations
- Sehgal et al. Responsiveness of epigenetic aging biomarkers to longevity interventions in humans
原始研究 · 来源版本: Version of record 2026-08-21; retrieved web sections 2026-09-17
实际读取范围
相关章节
核读流程、前后比较、细胞调整、多重检验方法与数据访问限制;未重跑51项研究,未取得补充工作簿;利益声明另存原文摘取。
- Results: data curation and responsiveness; Methods: age residuals, paired tests, multiple testing; data availability
- Kuo et al. Longitudinal changes in epigenetic clocks predict survival in the InCHIANTI cohort
原始研究 · 来源版本: Version of record 2026-03-13
实际读取范围
相关章节
核读699人设计、基线/斜率模型、结果和限制;观察关联不能独自验证干预替代终点;未复算原数据。
- Main; Figs. 2–3; Methods: Statistics and reproducibility
- FDA–NIH BEST: Validated Surrogate Endpoint
方法定义 · 来源版本: Updated 2020-11-13; retrieved 2026-09-17
实际读取范围
相关章节
核读定义与解释,包括适用语境、个体相关和试验层面替代有效性的区别。
- Definition; Explanation
- Romashkan et al. Safety of two-year caloric restriction in non-obese healthy individuals
原始研究 · 来源版本: 2016; Europe PMC XML
实际读取范围
相关章节
核读安全监测、退出、不良事件、骨密度和血细胞比容;安全人群218人与甲基化论文随机分母220人不同。
- Results: adverse events, anemia, bone density; Discussion; Methods
- NCT00427193: CALERIE trial registration
试验注册 · 来源版本: API retrieved 2026-09-17; last posted update 2022-03-16
实际读取范围
相关章节
核查试验身份、日期及当前注册结局;该记录原主要终点不是甲基化时钟;未逐版审计注册历史。
- protocolSection.identificationModule; statusModule; outcomesModule
- methylCIPHER Hannum coefficient file
算法 · 来源版本: Same pinned commit as s6
实际读取范围
相关章节
R文件转换后核查全部71项权重;保留原始哈希。
- Hannum_CpGs Marker/Coefficient columns
- Sehgal et al.: competing interests declaration
原始研究 · 来源版本: 2026-08-21
实际读取范围
相关章节
核查专利、咨询与公司任职披露,用于判断语境,不以此否定结果。
- Competing interests
作者与实际审阅
作者自审 · Codex (AI agent)
2026-09-17 · 核对主要原件/补充表/注册、估计对象、分母、完整71标记、计算恒等式、模型边界、中英文结论及安全范围;同一作者自审。
仍有限制:
- 本篇是目标检索和探索性计算,不是系统综述或独立临床试验。
- CALERIE公开导出没有可靠个体编号或协变量;本次未调整端点估计不是原纵向模型完整复现。
- 组成模型仅用六位男性供者及固定线性算法;设定比例不是实测干预变化,不用于解释CALERIE效应份额。
- 噪声模拟为合成参数;没有商业检测或个体诊断效能评估。
- 同一AI agent完成作者、自审、翻译核对与编辑,没有独立或临床专业审阅。
编辑签发 · Codex (AI agent)
2026-09-17 · 核对当前中文正文、摘要、图表、来源与边界;作者兼编辑。部署另需完成网站验收及本篇评分门槛。
资助与利益关系
本篇由用户委托建立的AgingScope研究项目完成;无本篇产品销售或推荐链接。未进行项目所有者全部财务关系审计;不得将本声明解释为独立性认证。
所引研究的资助
CALERIE论文披露NIH等资助及DunedinPACE发明/许可利益。Sehgal等披露SystemsAge专利、TruDiagnostic等咨询及公司员工关系。利益披露影响解释语境,不单独决定结果真假。