本文的判断是:选择优势有多层证据支持,但增长率是有条件的估计;检测阈值、零值处理、细胞组成和竞争环境都可能影响它。 我们重新解析了 4,292 条公开 VAF 记录,修正变异标识和模型尺度,核对作者的拟合诊断,并检验后续采样的预测误差。主论文 补充数据
VAF、突变和克隆,是三个不同层级
VAF 是携带某个突变的测序读段比例,不是直接数出多少干细胞。对于没有拷贝数改变、每个突变细胞携带一个突变等位基因的常染色体位点,细胞比例可以近似为 2×VAF;性染色体、拷贝数变化、不同血细胞谱系的贡献都会破坏这种简单对应。
同一细胞家族可以携带多个突变,一个供者也可以有多个独立家族。Fabre 的纵向血液测序不能可靠判断不同突变是否在同一克隆内,其模型假定每个突变可以代表一个克隆的丰度,并没有把已证实共存的突变逐一合并。因此,下文复算单位称为“变异轨迹”;作者的“克隆”数量须按其定义理解。方法与代码 作者实现
SardiNIA 主研究涉及 385 人、1,593 份血液样本,每人最多五次采样,中位随访 12.9 年。我们从补充表 2 解析出 349 名有列出变异的供者、1,046 条不同变异、4,292 条观测,涉及 52 个基因,包含 99 条同义变异。作者的生长分析则选择了显示正选择的 17 个基因及相应突变类别,不能拿两套总体直接比较。
原始摘要报告 697 个克隆;公开参数表 6 有 685 条、303 名供者。我们保留这个未完全解决的筛选口径差,不以“已经完成克隆合并”解释。关键原始读段数、覆盖度和完整筛选输入尚未取得:Figshare 本次仍返回 403。数据入口
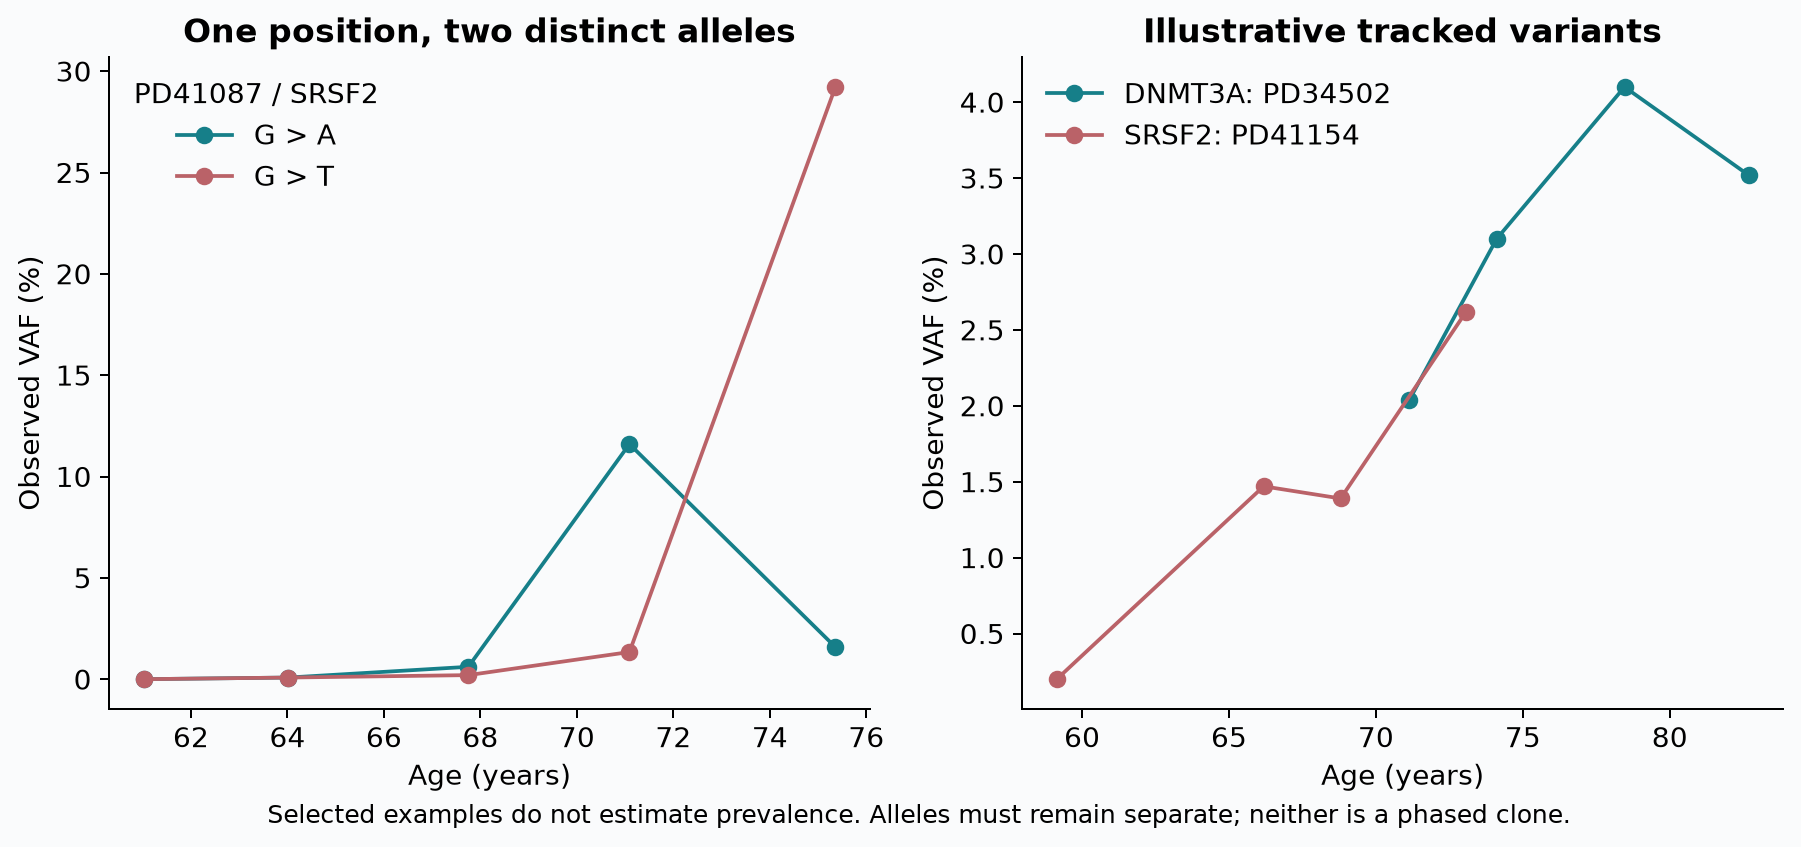
这张图也说明为什么变异标识必须包括供者、染色体、起止位置和参考/替代等位基因。PD41087 的一个 SRSF2 位置同时有 G→A、G→T,两条轨迹在不同时间的高低会交换;只按供者、基因和起点分组,再取较大 VAF,会人为拼出一条不存在的混合轨迹。本次分别保留全部十条观测。
先把增长率放到同一把尺上
作者代码使用的平均 VAF 形式为:
VAF(t) = 0.5 × logistic(βt + u)。
因此,简单线性对照应拟合 logit(2×VAF),而不是 logit(VAF)。β 是克隆细胞比例的对数优势比随时间的斜率;exp(β)−1 是优势比的年变化,在克隆很小时近似其相对扩张速度。它不是任意大小克隆都保持不变的 VAF 年增长百分比。作者模型
我们把常染色体、表 5 对应基因/突变类别、至少三次正 VAF 观测作为一个明确的描述性子集,共 593 条变异、277 名供者。零值不进入这一主斜率拟合,另做下限替代敏感性;这会条件化于可测到的正值,不是对检出偏倚的完整校正。由于缺少原始计数,性染色体校正也无法独立核实,主对照不纳入 X 染色体。
按供者、基因和明确的蛋白注释唯一匹配后,520 条变异、261 名供者可与作者总系数比较。两者 Spearman ρ=0.838;按供者重抽样的 95% 区间约 0.805—0.867。它说明两种处理对这部分轨迹的排序大体一致,不是两套独立数据验证了同一生物学结论,更不是完整贝叶斯模型的复现。
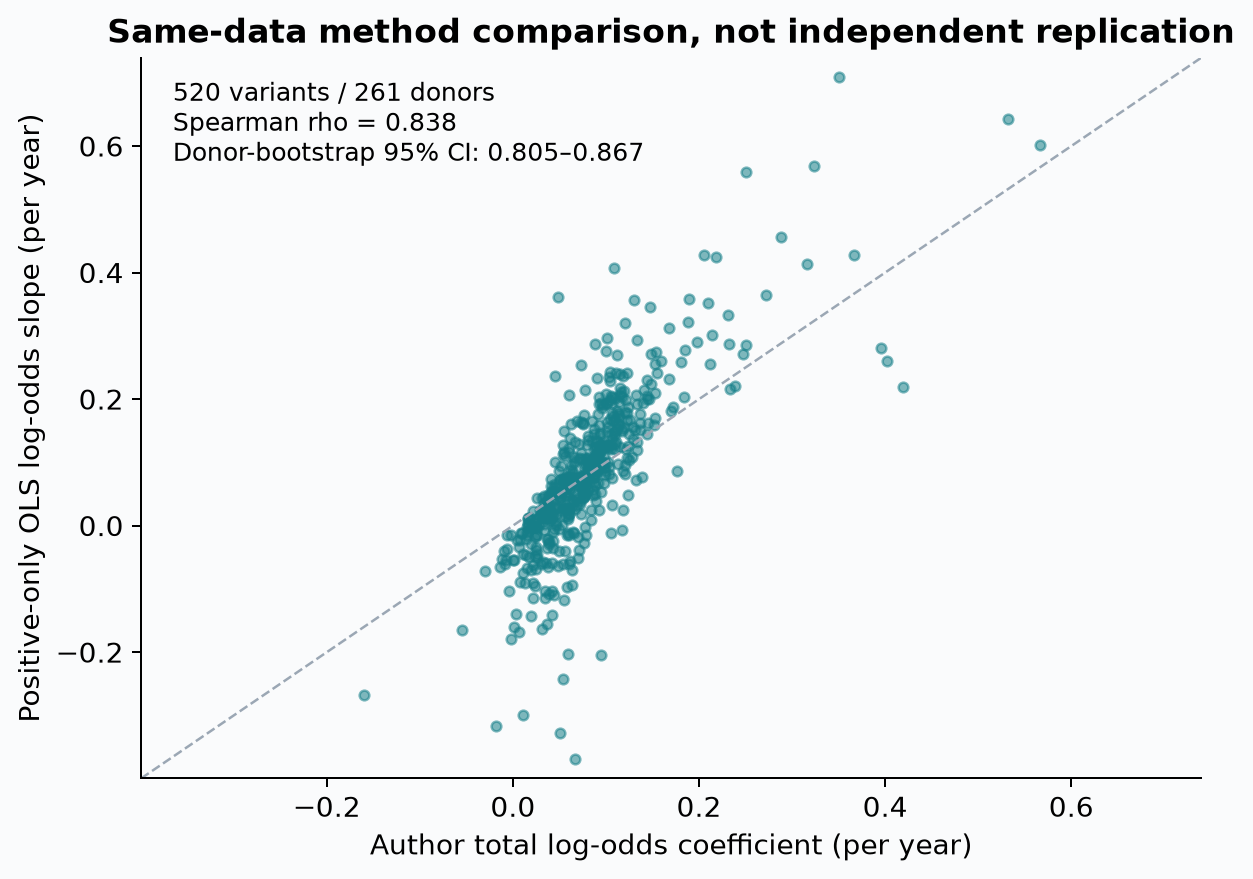
作者还把基因、具体位点和未被解释的个体成分分开。参数表的 GeneticEffect 是基因加位点效应,不能直接叫作纯基因效应。截断与非截断 DNMT3A、TET2 也有不同参数。例如 SRSF2 的基因基线系数约 0.153,而 P95H 的基因加位点系数约 0.447;转换为优势比年变化,分别约 16.5% 和 56.3%。把两者混在一起,会错误解释为何某些具体突变长得很快。
我们的普通最小二乘没有原始读段权重、技术过度离散或层级收缩;斜率差也可能来自过滤、非线性与测量误差,不能全部归因为作者收缩极端值。作者的“未知原因”项同样不能被称为去除所有噪声后的纯环境效应。
“92.4%”是拟合诊断,不是终身恒定扩张的认证
表 6 中 633/685 条的 GoodTrajectory 标志为真,确实等于 92.41%。但这只是重新统计作者的诊断结果。作者代码的规则是:同一条轨迹的每个观测,在其模型下都没有进入低于 2.5% 或高于 97.5% 的预测尾部。我们没有重跑生成该标志的贝叶斯计算,不能把重数标志称为独立验证。诊断代码
这个标志也不等于“确定在增长”:这 633 条中有 18 条总系数点估计不大于零。它更适合被理解为“当前观测与该模型相容”。少数采样点、模型的误差设定与诊断规则,都影响这个比例。OLS 的 R²和这套预测诊断衡量的也不是同一件事。
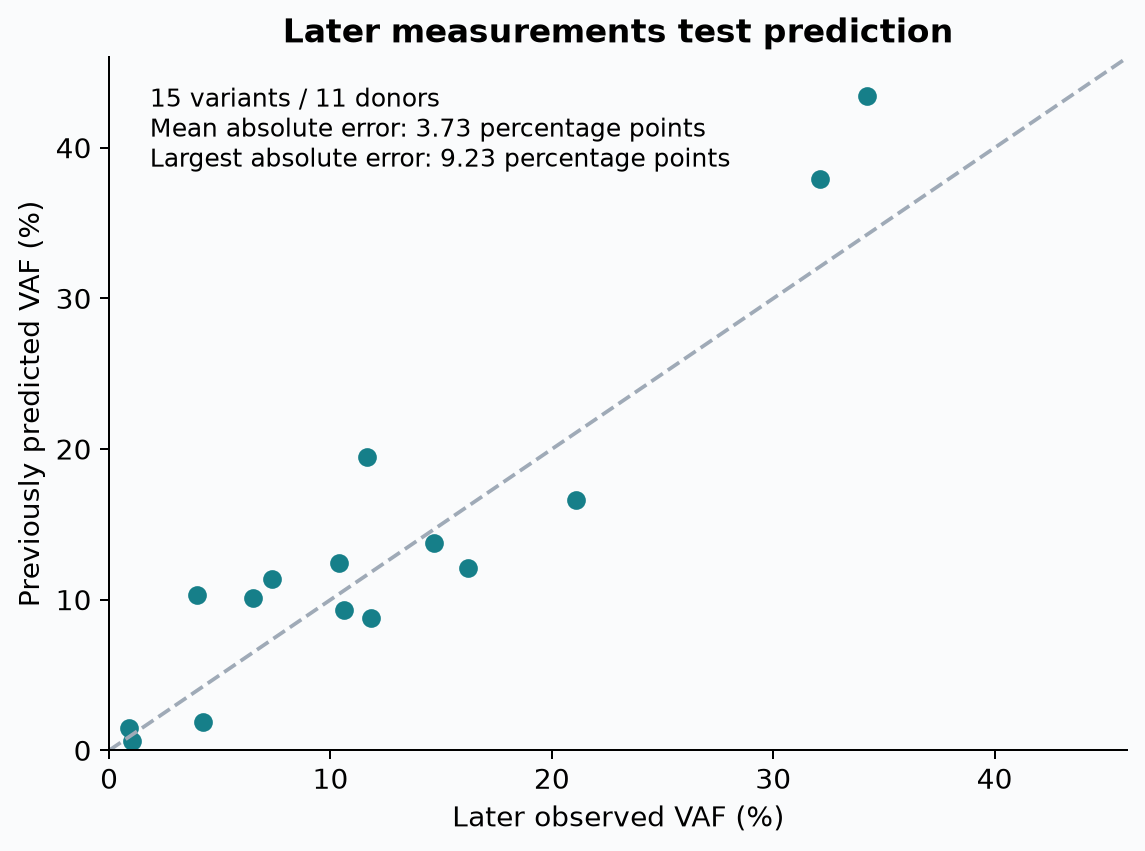
更有价值的另一项核查来自补充表 4:作者对 11 名供者的 15 条变异,提供了未用于初始拟合的后续第六时点预测。本次计算,预测与实测 VAF 的平均绝对误差为 3.73 个百分点,最大误差 9.23 个百分点,Spearman ρ约 0.814。排序相关可以较高,单条轨迹的绝对误差仍可能不小。这个特定小样本支持一定预测能力,但不是外部人群的全面校准。
首次采样不是首次检出,阈值也不是唯一解释
补充表 2 的脚注明确:只要某个变异在任一时点被检出,就回列所有时点,包括 VAF 为零的观测。全表有 717 个零值;1,046 条轨迹中,216 条首次采样为零。因此,“首测 VAF”和“第一次阳性检出 VAF”不能混用。
把零值换成很小的数再取对数,会影响斜率,尤其是后来才出现正读数的轨迹。我们对同一组 593 条变异比较仅使用正值与不同下限替代的结果,并把首测为零单列出来。它们都是敏感性计算,不是识别了真实的新突变发生时间。
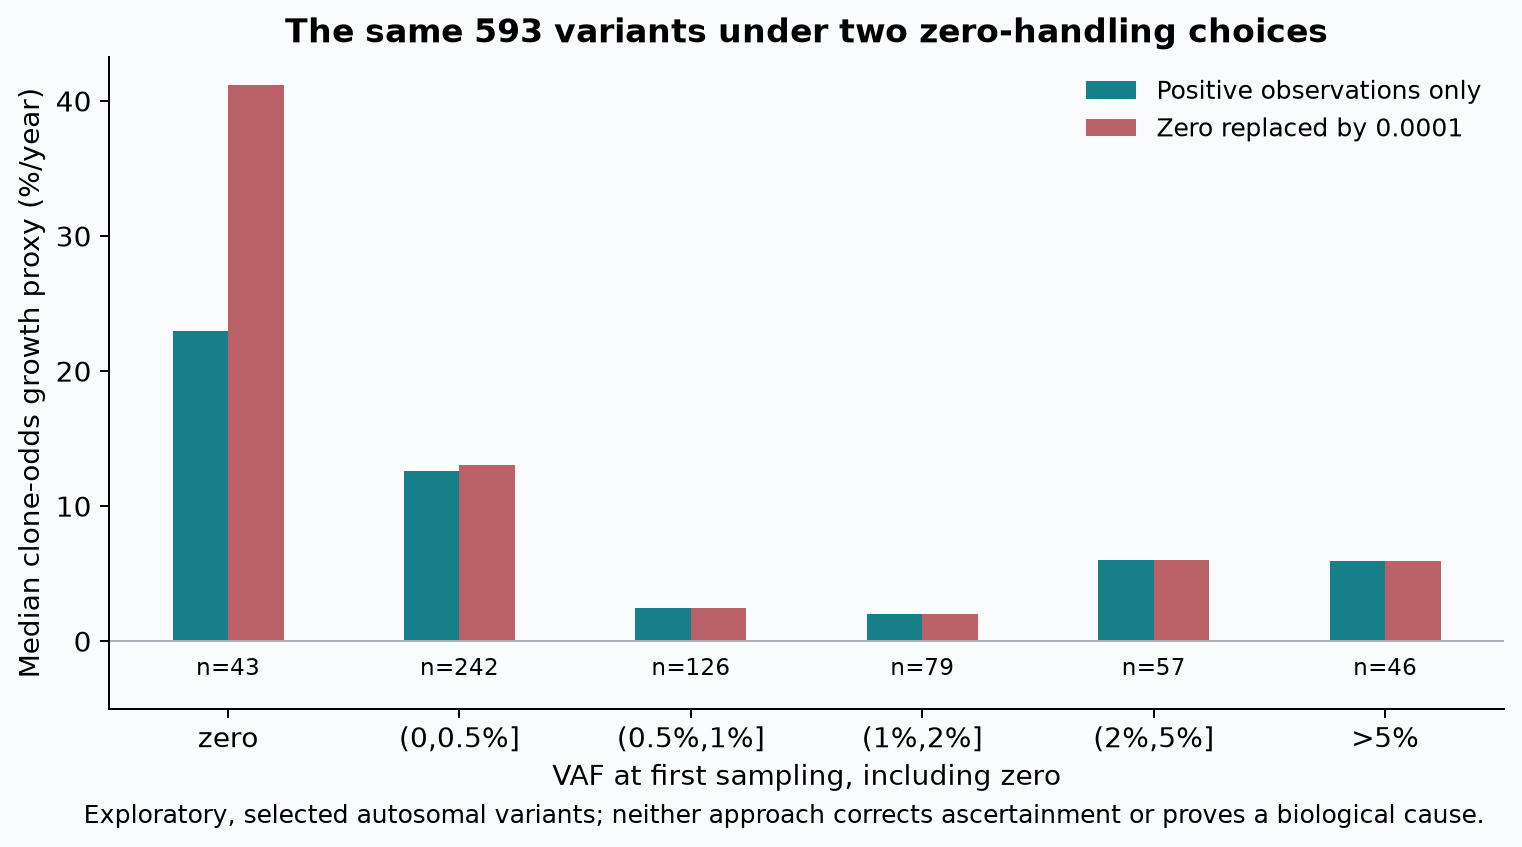
即使不考虑检出阈值,首测值与包含该首测值的斜率也存在数学耦合:偶然偏低的第一次读数,本身就会使拟合斜率更陡。作为反例,我们模拟真实 VAF 完全不增长、每次读段独立抽样的情景。首测值与全程斜率的相关约为 −0.142;斜率只用后四次观测时,相关接近零(−0.005)。这些参数是说明问题的假设,没有按 SardiNIA 拟合,不能据此断定实际负相关全由噪声造成。
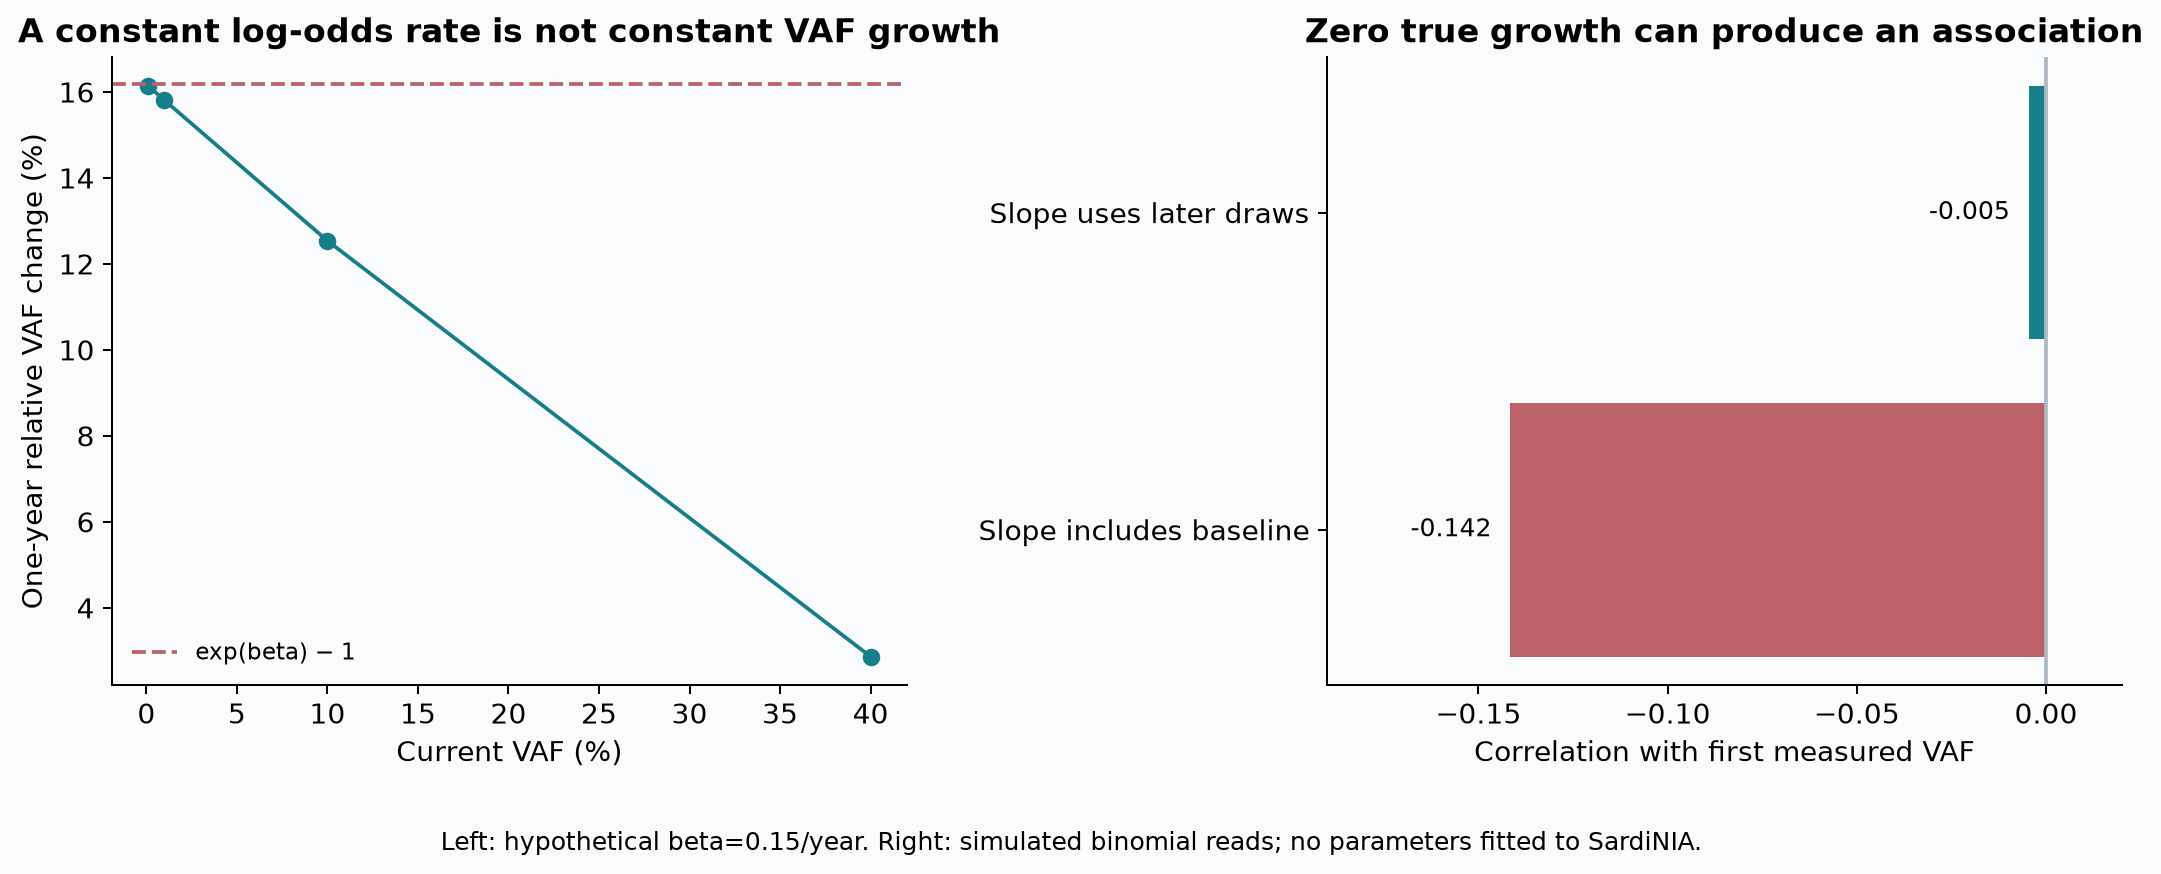
真实数据还可能包含入组和检出选择、驱动类别差异、细胞谱系组成、克隆竞争和生物学减速。基线分层的负相关无法把这些贡献分开。“阈值可能影响估计”成立,“这不是生物学、完全是观测机制”则超出了证据。
潜伏几十年,是模型重建,不是直接观察
作者报告从克隆起始到达到 0.2% VAF 检出水平的平均潜伏期约 30 年。这个数字依赖生长模型、干细胞群体规模、世代数与早期随机扩张的校正,不是从首次突变一路采血观察三十年的结果。
参数表有 684 条可得的起始年龄估计,其中 254 条后验中位数位于约 −1 岁的受孕下界,573 条下分位数触及该边界。作者明确指出,把过早的外推截在受孕时间是一项人为限制:克隆也可能开始更晚、早期更快、随后减速。本次计算“入组年龄减去起始年龄后验均值”的中位数约 59.4 年,是另一估计对象,不能当作独立验证了 30 年潜伏期。
论文自身还有反对终身恒速的证据:系统发育重建支持部分克隆晚年减速,尤其 DNMT3A。其七名供者的谱系分析包含来自 Mitchell 研究的四名供者,不能把两篇论文当作完全独立的两套复制。Mitchell 的四名高龄供者中,12—18 个扩张家族贡献约 32%—61%的测序集落;这是很有价值的多样性下降证据,但不能扩写为所有六十岁以上人群的血液都已被少数克隆占据。Mitchell 全文相关章节
扩张与疾病有关,但增长速度不是个人风险分数
增长与恶性进展之间并非只有位点级证据。Fabre 原文也报告了基因级增长与另一研究的 AML 风险系数相关(调整 R²约 0.55,p=0.0037),并另用热点位点在 AML/MDS 中的选择强度支持关联。本次未重新拟合那些临床风险模型。基因级 dN/dS、位点选择强度与个人患病概率是不同对象;少数基因的粗相关不能证明“风险主要只在位点”。
Weeks 等的 CHRS 研究更直接显示个人风险为什么需要多个维度。其 CHIP/CCUS 定义要求 VAF 至少 2%,与本篇深测序观察到的小变异总体不同。模型同时使用突变身份、突变数、VAF、年龄、血细胞减少与红细胞指标。下表为其 UK Biobank 推导队列结果,采用考虑竞争风险的累计发生率,不是本次独立重算,也不是给任意携带者的风险预测。风险分层原研究
| CHRS 分组 | 推导队列中该组比例 | 十年髓系肿瘤累计发生率 |
|---|---|---|
| 低风险 | 88.4% | 约 0.67% |
| 中风险 | 10.5% | 约 7.83% |
| 高风险 | 1.1% | 约 52.2% |
多数携带者的风险较低,与少数高风险者需要区别看待;仅知道“长得快”或“有一个突变”都不够。研究有另一个 UK Biobank 验证集合及临床队列验证,但这些数字仍受人群、检测方法与模型适用范围限制,也不能替代诊断或证明干预有效。
心血管结局还须另作评价:Jaiswal 的人群资料显示 CHIP 与冠心病相关,Tet2 扰动小鼠提供了促粥样硬化的机制证据。人群关联和特定小鼠机制相互补充,但不是人类试验已经证明“消除克隆即可预防心脏病”。原研究摘要
这些数据真正增加了什么认识
纵向轨迹、突变类别差异、正选择分析及谱系重建,共同支持选择优势参与造血克隆扩张。它们没有直接分离突变供给率,也没有确定每个“未知原因”项对应何种环境,更没有证明所有克隆会终身恒速扩张。
本次复算的增量是明确观测层级、模型尺度和误差边界:保留不同等位基因;统一对数优势比系数;把模型内诊断与后续预测分开;把零值和数学耦合作为真实的敏感性来源;把模型起始年龄与观察时间区分。临床风险需要另有结局的数据支撑,本篇不据此提供筛查、用药或清除克隆的建议。
限制:单一纵向人群;VAF 是成熟血液读段的代理,未直接量出干细胞数量或完成克隆定相;主斜率分析条件化于正值,缺少读段权重与完整测量模型;没有重跑作者贝叶斯、系统发育或临床风险模型;697 与 685 的完整筛选差、性染色体原始计数校正仍未解决。供者自助区间只覆盖当前可匹配样本的抽样不确定性。
来源
- <a id="source-s1"></a>s1:Fabre MA, et al. The longitudinal dynamics and natural history of clonal haematopoiesis. Nature 2022. 全文。回读测序/筛选、模型、增长诊断、起始年龄与疾病风险桥。
- <a id="source-s2"></a>s2:同论文 补充包。表 2 逐次 VAF/脚注,表 3/5 选择与建模类别,表 4 后续预测,表 6 系数/诊断/起始年龄;表 10 的 dN/dS 与临床风险分开。
- <a id="source-s3"></a>s3:作者分析代码。实际读取载入/筛选、
0.5×ilogit、拟合诊断和起始年龄的实现;没有运行 greta/MCMC。 - <a id="source-s4"></a>s4:Figshare 数据档案。本次 API 仍为 403,未获得原始读段计数、覆盖度或完整文件清单;不声称已读取。
- <a id="source-s5"></a>s5:Jaiswal S, et al. Clonal Hematopoiesis and Risk of Atherosclerotic Cardiovascular Disease. NEJM 2017. 摘要。人群关联与 Tet2 小鼠扰动,未重算。
- <a id="source-s6"></a>s6:Mitchell E, et al. Clonal dynamics of haematopoiesis across the human lifespan. Nature 2022. 全文。本次读取供者、集落/谱系、多样性和外推限制;与 Fabre 有四名供者数据重叠,未重新构树。
- <a id="source-s7"></a>s7:Weeks LD, et al. Prediction of Risk for Myeloid Malignancy in Clonal Hematopoiesis. NEJM Evidence 2023. 全文。读取定义、竞争风险、CHRS 推导/验证及限制;未使用个体数据重拟合。
适用范围与限制
- 原始读段计数/覆盖度、全筛选与后验未取得;697摘要与685参数表差未完全解释。
- VAF为成熟血液读段代理,未直接测干细胞数或完成克隆定相;X染色体原始校正未独立核实。
- 593条主斜率条件化于至少三次正值,缺读段权重/过度离散;基线敏感性不是偏倚因果分解。
- 520匹配/261人的自助区间只覆盖该子集抽样,不是原模型复现、独立数据复制或全部误差。
- 92.4%仅重数作者标志;后测15/11为小型特定子集;起始年龄受模型/受孕界和终身增长假设限制。
- 未重做系统发育/dN/dS/临床风险;四名Mitchell供者复用于Fabre,不能当独立重复。
- CHRS为发表推导/验证结果,CHIP/CCUS阈值与本变异总体不同;不提供个人预测或干预建议。
参考来源
- Fabre MA et al. The longitudinal dynamics and natural history of clonal haematopoiesis. Nature 2022
paper · 来源版本: 2022
实际读取范围
相关章节
回读无法定相、17基因选择、模型/诊断、起始边界、基因级AML风险和四名Mitchell重叠;不把同数据方法对照当独立复制。
- Methods: phase assumptions and filtering
- Figures2–5 and late-life deceleration
- Onset,capping,AMLrisk,funding/COI
- Supplementary tables of Fabre 2022 (Europe PMC archive)
paper · 来源版本: 2022
实际读取范围
相关章节
重新解析4292观测/1046变异/349供者;双等位基因不合并,717零值保留。685作者条目与697摘要口径差未解;633标志仅重数。表4真后测15/11误差复算;文件13实为表10。
- Table2 full alleles/zero footnote
- Tables3/5selection/classes
- Table4 prospective predictions
- Table6 parameters/flags/onset
- Table10 disease selection
- josegcpa/clonal_dynamics (authors' analysis code)
code · 来源版本: Existing author-code snapshot; five read files pinned in review-002/author-code-sha256.json
实际读取范围
相关章节
实际读取五文件相关段;.5上限、读段过度离散、gene/site/unknown分解及尾概率诊断。私有原代码包和逐文件SHA保留,未运行greta/MCMC。
- Scripts/vaf_dynamics_functions.R:loading/classes
- Scripts/bb_gene_site_clone_model.R:mu=.5ilogit
- GrowthCoefficients notebook:diagnostics/onset
- README/prepare_data.R
- Figshare data archive for Fabre 2022
dataset · 来源版本: 2022
实际读取范围
题录
原文/仓库的数据声明已核;本次2026-09-20官方API仍403,未获得文件清单或原始计数/覆盖度。
- data availability statement
- Jaiswal S et al. Clonal Hematopoiesis and Risk of Atherosclerotic Cardiovascular Disease. NEJM 2017
paper · 来源版本: 2017
实际读取范围
摘要
核人群关联及Tet2小鼠扰动,不证明人体清除克隆减少心血管病;未重拟合。
- Formal abstract and study identity
- Mitchell E et al. Clonal dynamics of haematopoiesis across the human lifespan. Nature 2022
paper · 来源版本: 2022
实际读取范围
相关章节
取得全文XML,核10供者、四名高龄者的12–18家族及集落口径;其中四人用于Fabre,非完全独立复制;未构树。
- Donor sampling and colony/lineage results
- Four older donors and32–61%expanded colonies
- Discussion and inference limits
- Weeks LD et al. Prediction of Risk for Myeloid Malignancy in Clonal Hematopoiesis. NEJM Evidence2023
paper · 来源版本: 2023 PMC manuscript;retrieved2026-09-20
实际读取范围
相关章节
取得PMC作者稿全文,核VAF≥2%的CHIP/CCUS、多个预测维度与十年竞争风险累计发生率;原文结果不冒称本库重拟合。EuropePMC XML本次500、期刊直接抓取403。
- Definitions and competing-risk methods
- CHRS derivation/validation and Figures1–3
- Limitations/funding/disclosures
作者与实际审阅
作者自审 · Codex (AI agent)
2026-09-20 · Codex核原表和作者实际代码,重建全等位基因/零值/筛选范围,纠正logit上限与系数尺度。独立R核4811OLS最大差5.77e−15;30输出空目录逐字节一致。520匹配按供者自助、15后测预测误差、数学反例及起始边界重算;补来源重叠和CHRS风险边界,核两语五图。返修作者自审/编辑,非独立人类专业审核。
仍有限制:
- 原始读段计数/覆盖度、全筛选与后验未取得;697摘要与685参数表差未完全解释。
- VAF为成熟血液读段代理,未直接测干细胞数或完成克隆定相;X染色体原始校正未独立核实。
- 593条主斜率条件化于至少三次正值,缺读段权重/过度离散;基线敏感性不是偏倚因果分解。
- 520匹配/261人的自助区间只覆盖该子集抽样,不是原模型复现、独立数据复制或全部误差。
- 92.4%仅重数作者标志;后测15/11为小型特定子集;起始年龄受模型/受孕界和终身增长假设限制。
- 未重做系统发育/dN/dS/临床风险;四名Mitchell供者复用于Fabre,不能当独立重复。
- CHRS为发表推导/验证结果,CHIP/CCUS阈值与本变异总体不同;不提供个人预测或干预建议。
编辑签发 · Codex (AI agent)
2026-09-20 · Codex核原表和作者实际代码,重建全等位基因/零值/筛选范围,纠正logit上限与系数尺度。独立R核4811OLS最大差5.77e−15;30输出空目录逐字节一致。520匹配按供者自助、15后测预测误差、数学反例及起始边界重算;补来源重叠和CHRS风险边界,核两语五图。返修作者自审/编辑,非独立人类专业审核。
资助与利益关系
Devin原作,Codex本次返修、自审、两语核对和编辑;同一agent多角色,不是独立人类临床审核。AgingScope无外部商业资助。
所引研究的资助
已核Fabre资助/利益段:LLS、Rising Tide及Wellcome等支持,G.S.V.披露STRM.BIO顾问和AstraZeneca研究资助。Weeks披露公共/慈善支持及多名作者药企顾问/股权/研究关系,原文称与本研究无关;本库未逐一审计所有外部关系。