现有实验支持:改变环境及其机械感知,能够改善啮齿类老龄前体细胞的部分活动和修复相关读数。完整的组织再生、持久的细胞年轻化与人体神经功能恢复,则还需要不同层次的证据。
本篇重算2019年关键研究的动物源表,重新整理公开转录表达数据,并建立力学量换算与髓鞘形成—丢失模型。研究限定在少突胶质前体细胞及相关环境,证据检索截至2026年9月21日。
环境怎样参与细胞活动
少突胶质前体细胞简称OPC。它们可以增殖、移动,并分化为形成髓鞘的少突胶质细胞。髓鞘包裹神经轴突,修复这层结构需要合适的细胞、轴突和周围条件。OPC活跃起来,是其中一个环节。
2019年Segel等人的研究把注意力放在机械环境。细胞与外部基质连接,拉动基质时会遇到不同的阻力;细胞膜、骨架和机械敏感通道可以把这种条件转成细胞内信号。研究中的PIEZO1通道与钙信号及OPC活动有关。在较硬培养材料上降低其表达,可以改变细胞的反应。原始研究
这里的“年轻”需要先说明:主要培养比较使用出生后不超过7天的大鼠细胞和14—18月龄大鼠细胞。新生期还包含发育状态差异,不能直接当成普通年轻成年人与老年人的对应关系。
原研究用了几类互相补充的实验:
| 实验 | 提供的证据 | 解释时需要保留的条件 |
|---|---|---|
| 将老龄细胞移入新生动物,或放到不同年龄来源的去细胞基质上 | 老龄细胞仍有响应环境的能力 | 环境的化学组成、结构与力学性质可能一起改变 |
| 在经过设计的软、硬凝胶上培养细胞 | 在该材料体系中,刚度与细胞活动有关 | 配体连接、几何、培养时间和力学标定仍影响外推 |
| PIEZO1抑制、骨架扰动及钙成像 | 机械感知通路参与这些反应 | 不同扰动的作用对象和特异性并不相同 |
| 在老龄动物损伤模型中改变PIEZO1 | 出现更高的增殖相关标记、成熟细胞密度和髓鞘染色读数 | 小样本、干预先于损伤,以及单次晚期测量限制了再生归因 |
凝胶实验还检查了播种密度、存活情况及新生细胞在不同刚度下的反应。这些对照增加了机械机制的可信度。不过,去细胞基质交换或用酶处理组织所产生的全部效应,仍不能只归给一个刚度数字。
“软”需要共同的测量定义
我们从源表提取了新生、成年和老龄三个阶段各3只大鼠的皮层力学均值。对应的表观压入模量K,平均约为248、369和472 Pa。这些是动物层均值,不是把每一个探针测点当作一只动物。来源1
培养凝胶则报告剪切模量G。图示软、硬凝胶约为0.4和1.3 kPa,这是按原图尺度读取的近似值,未取得相应逐次测量原表。K、G以及常见的杨氏模量E,虽然都用帕表示,却不是同一个物理量。
在均匀、各向同性的线性弹性近似下,若假设泊松比ν为0.5:
E = 3G;K = E / (1 − ν²),所以E = 0.75K。
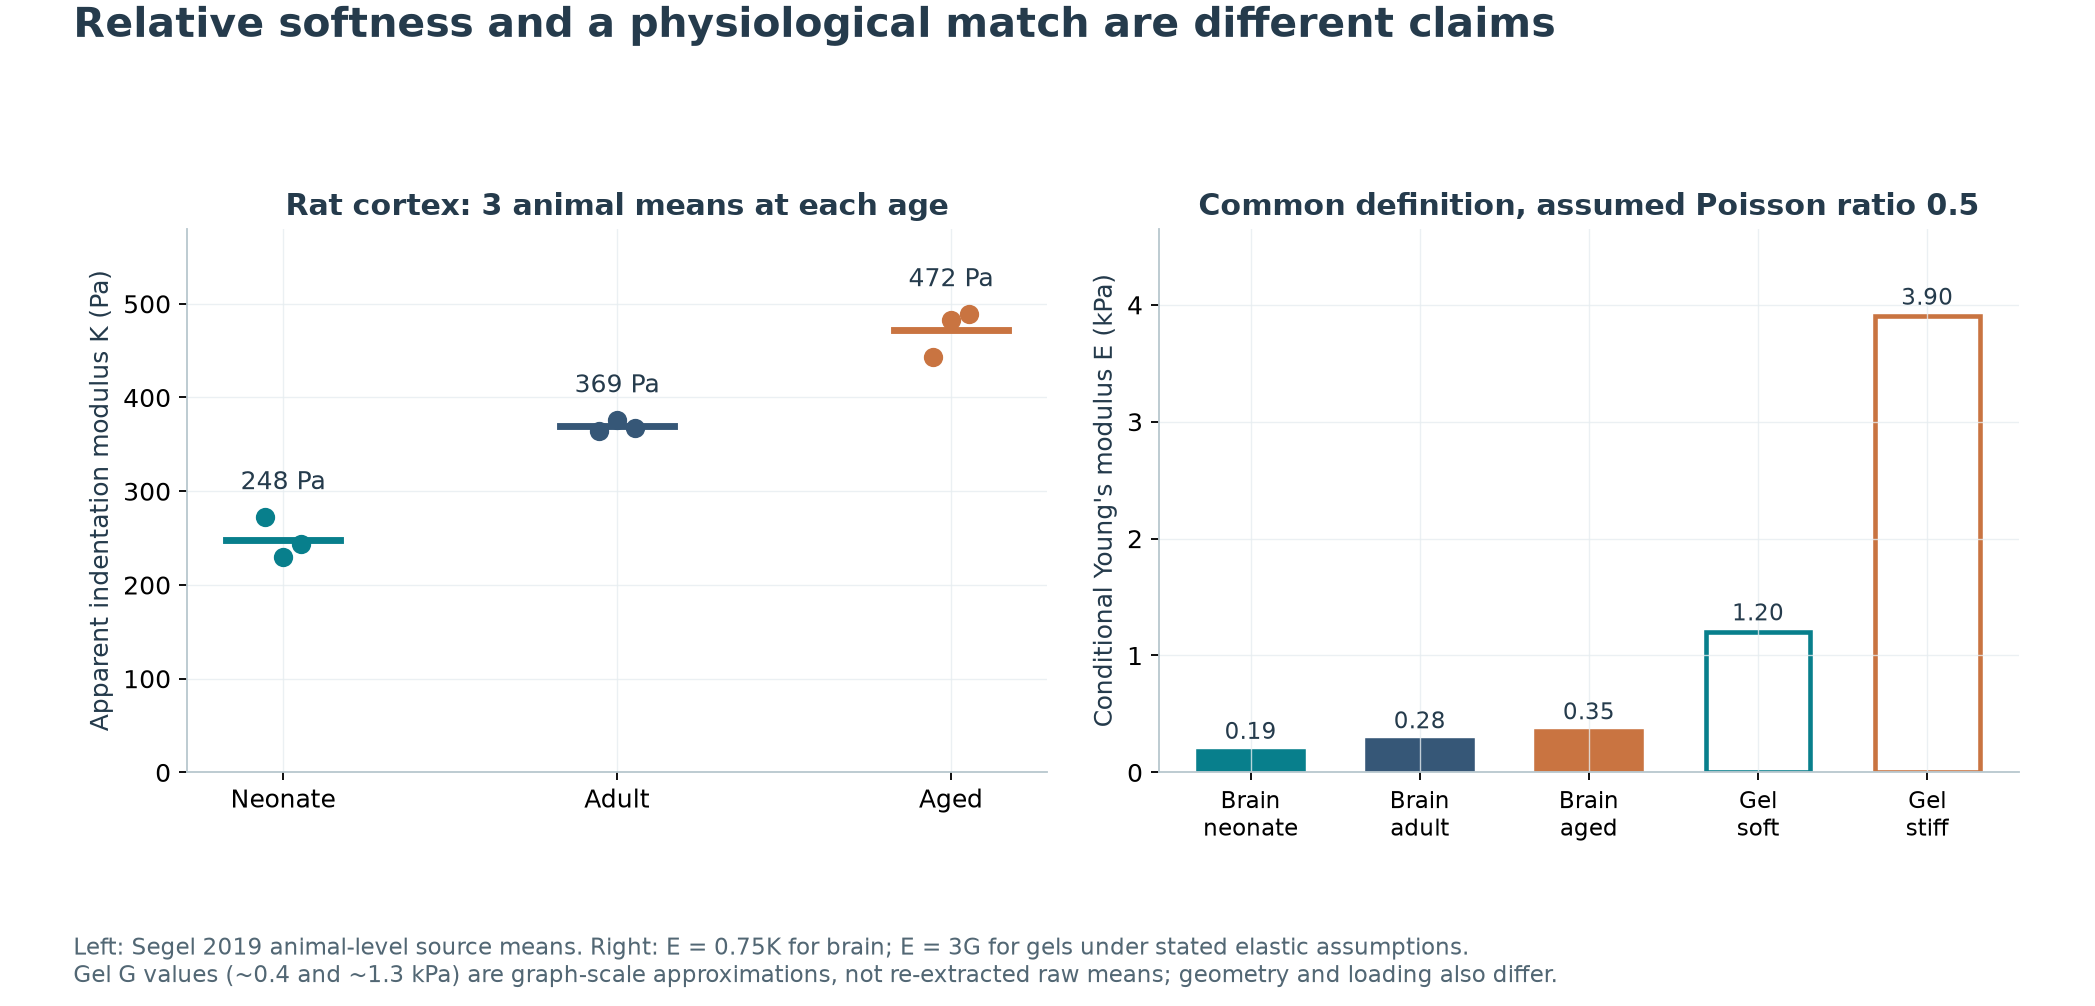
按这个假设统一到E,三个脑组织均值约为0.19、0.28和0.35 kPa,而两种凝胶约为1.2和3.9 kPa。这样一来,相对较软的凝胶,不会仅凭“软”这个名称就成为年轻脑组织的绝对力学复制品。
这没有否定凝胶上的实验效应。它限制的是把培养结果直接换算成真实组织阈值。脑组织还存在黏弹性、方向性和复杂结构,探针压入与细胞牵引的加载条件也不同。
尺度差异还体现在人体研究中。2015年的一项研究在45名56—89岁、认知正常且淀粉样蛋白PET阴性的参与者中,用磁共振弹性成像观察到多个脑区的读数随年龄下降,但并非所有区域都如此。人体脑力学研究 这种动态、较大尺度的横断面测量,与大鼠切片局部压入的物种、年龄窗口和测量条件不同,不能合并成一条“所有脑组织随年龄变硬”的普适曲线。
回到动物源表:三项读数确实改善了多少
研究者在18月龄小鼠中,通过病毒递送的基因编辑策略,降低OPC相关的PIEZO1表达,再制造局部脱髓鞘损伤。它是部分、存在细胞间差异的靶向操作,不应理解为每个OPC都完成了同样程度的基因敲除。源表里的三个主要结局,每个条件各有3份动物记录。来源1
我们按动物层数值重算,得到:
- 源表定义的EdU/GFP/OLIG2标记比例:对照约13.7%,靶向组约33.2%,相差19.4个百分点。
- CC1与OLIG2共同标记的成熟细胞密度:约64.0与121.8个/mm²,相差57.8个/mm²。
- FluoroMyelin阳性面积比例:约8.2%与29.1%,相差21.0个百分点。
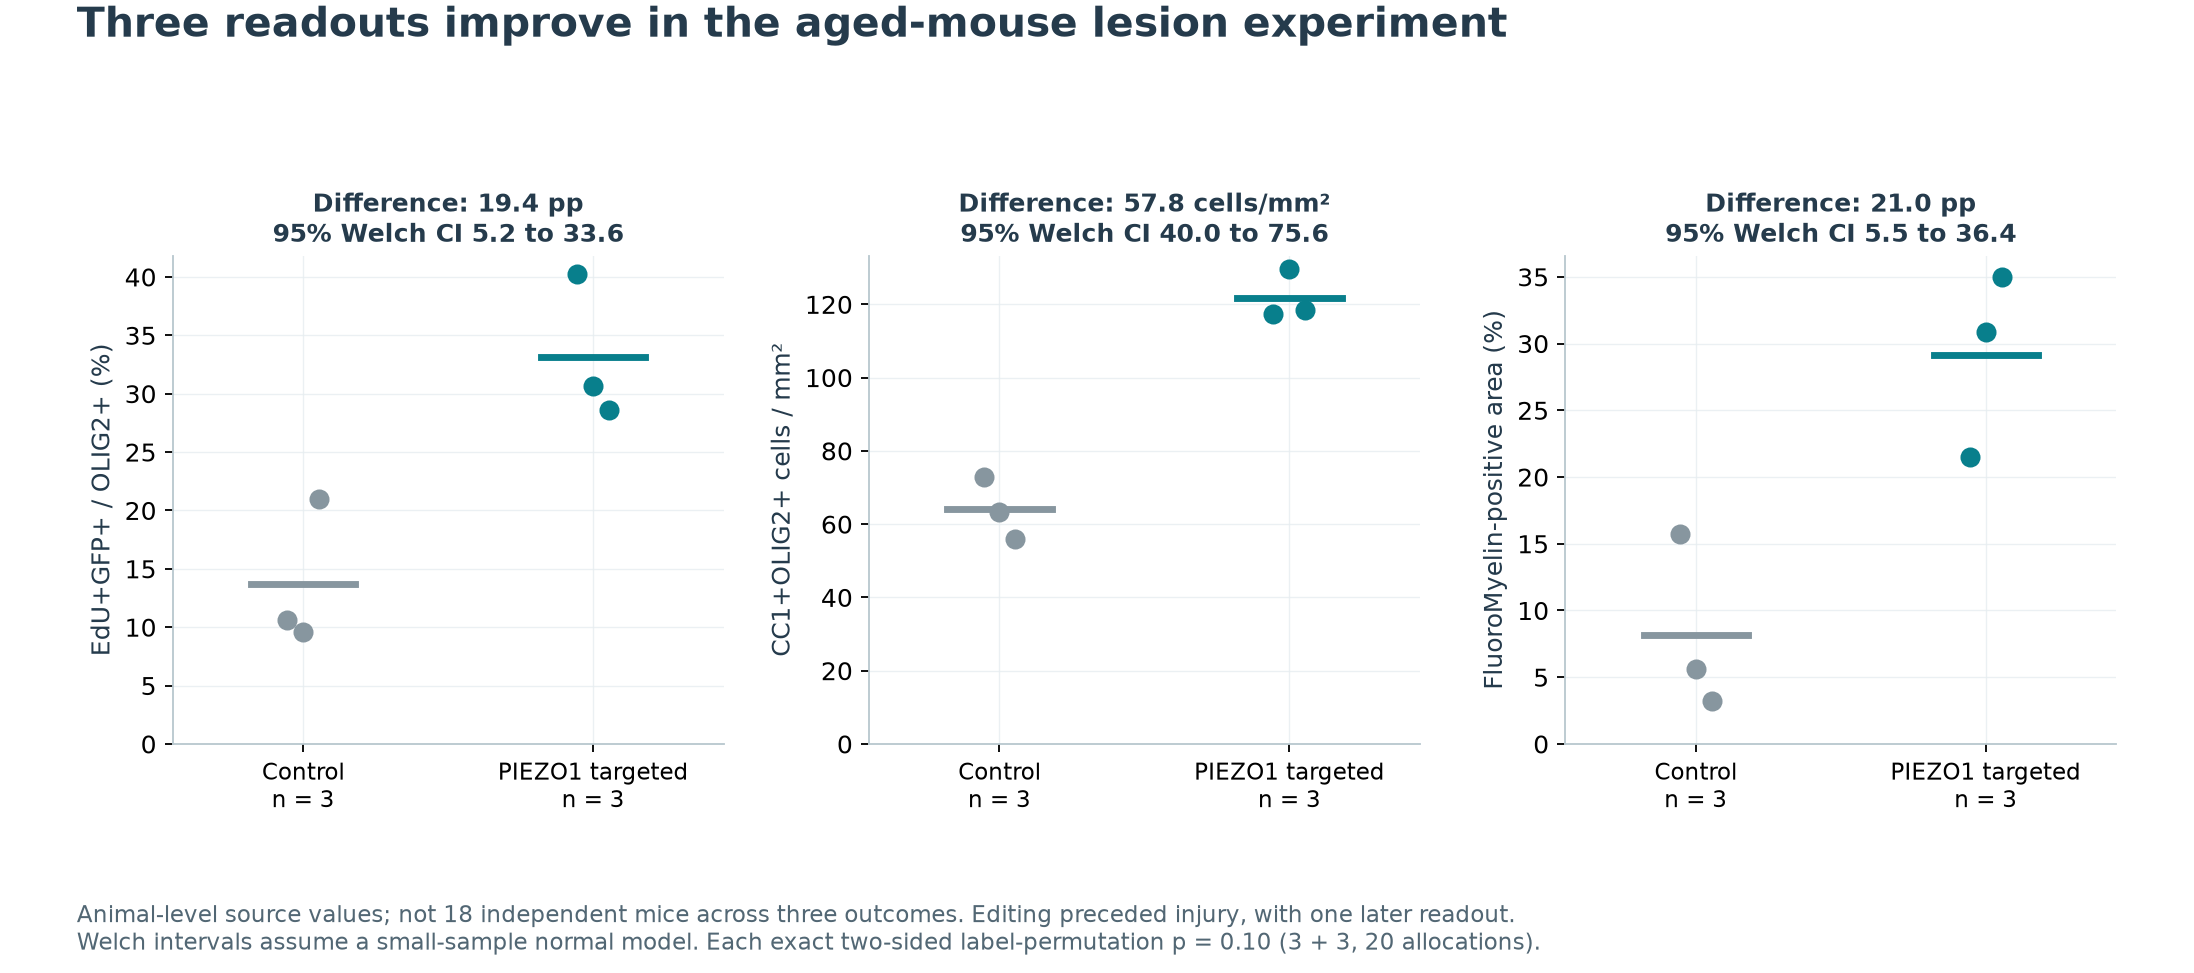
用Welch方法计算的近似95%区间,分别为5.2—33.6个百分点、40.0—75.6个/mm²和5.5—36.4个百分点。对这三个探索性比较作Holm校正后,基于该参数模型的p值仍低于0.05。
但每组3只动物,无法充分检查分布假设。在另一项敏感性检查中,若假设组标签可以交换,3+3共有20种分配方式;三个结局的双侧精确置换p值都是0.10。即使一组的所有数值都高于另一组,如此小的设计也会遇到这种检验精度限制。
数据方向一致,与已经获得精确、可推广的效应估计,是两种不同强度的判断。 上述检验的假设不同,不能挑一个数字代替整个证据。三个结局也不能算成三项独立动物重复,更不能因为有18个数值就称有18只独立小鼠。
更多髓鞘染色,可能经过不同过程
一个重要的时间条件是:正式图注显示,病毒递送在损伤前14天进行,损伤后再过14天取材。因此,晚期髓鞘染色更多,可能同时包含新形成增加、持续丢失减少,或一开始损伤就较轻的贡献。来源1
为说明这个问题,把理想化的髓鞘覆盖比例记为M,形成系数记为a,丢失系数记为b:
dM/dt = a × (1 − M) − b × M
在参数固定时,当a、b非负且总和为正时,长期覆盖比例是a / (a + b)。相同的覆盖比例可以由不同的形成和丢失速度产生;在有限观察时间内,起始损伤程度也会改变结果。
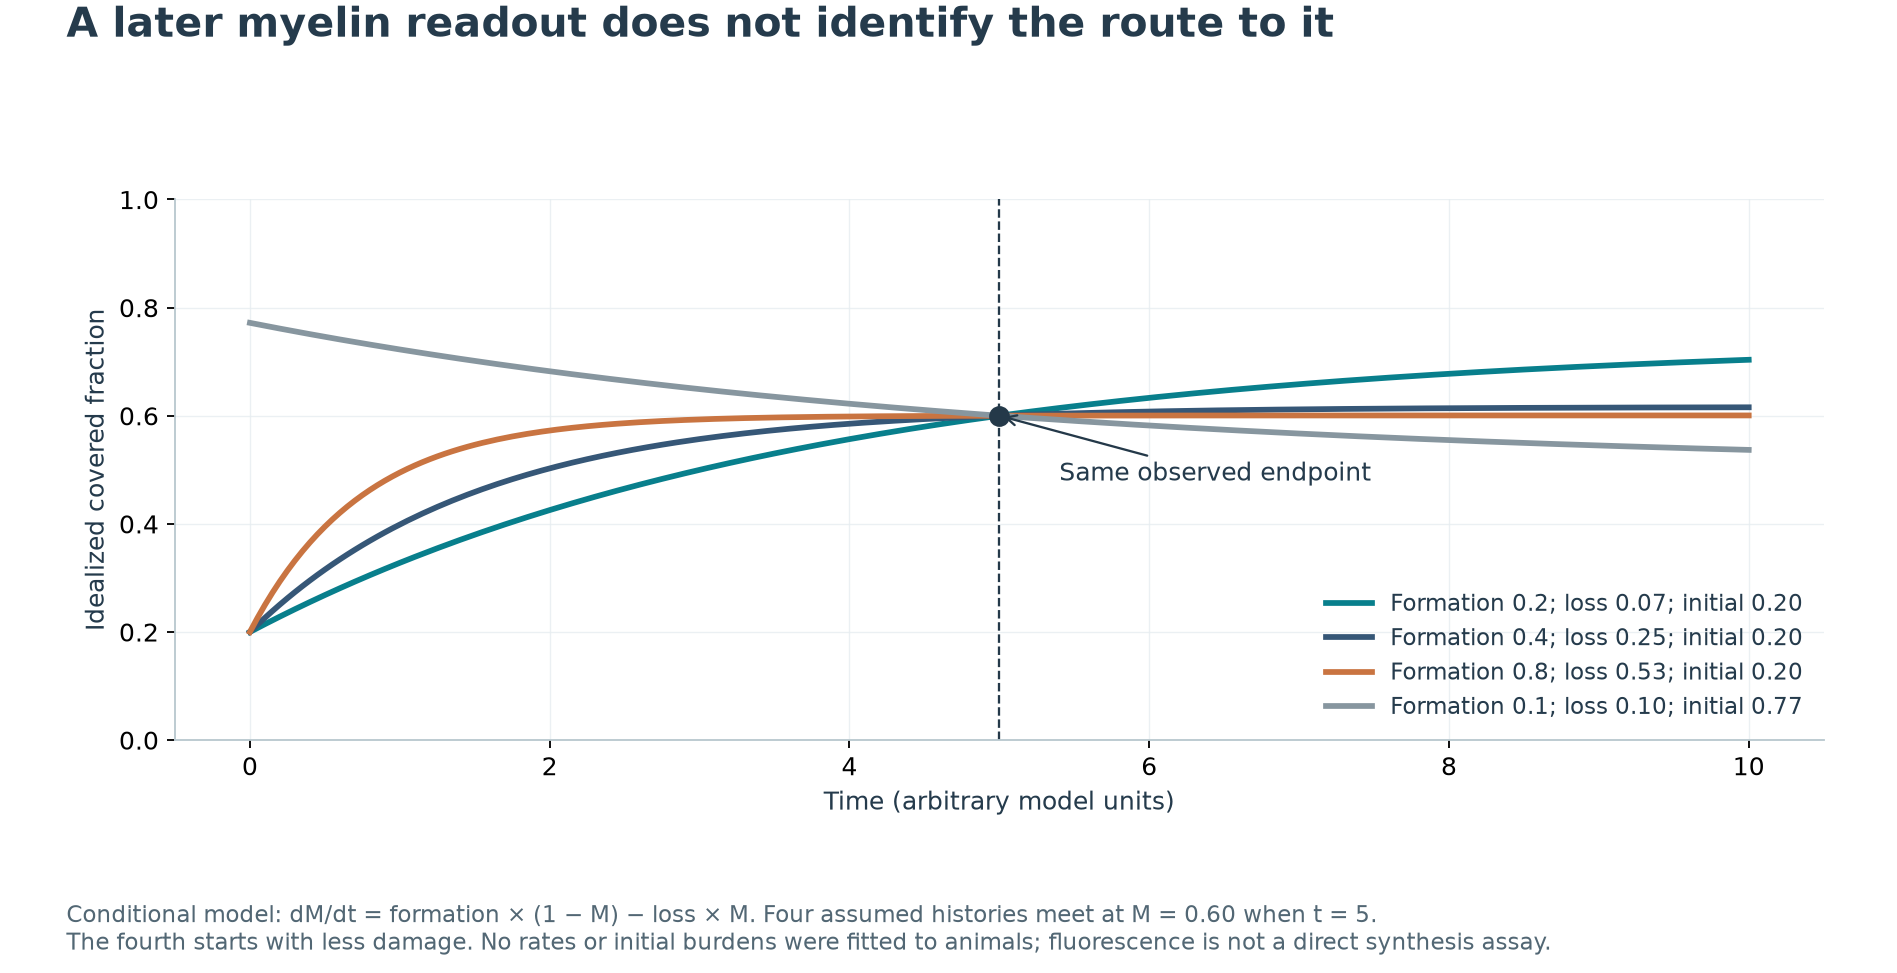
我们人为设定一个观察点,在5个模型时间单位时覆盖比例都为60%,构造了四条不同轨迹。其中三条从相同起点出发,形成和丢失参数不同;另一条从较轻的初始损伤出发。它们都能经过同一个观察点。
这些参数没有拟合小鼠,模型时间也不是天。模型说明单一终点不能唯一识别过程,没有证明原研究实际发生了哪一种保护或修复机制。FluoroMyelin染色本身也不是新髓鞘合成的直接速率测定。
原研究另有损伤后第7天注入chABC或骨架扰动工具的实验,这些实验更接近损伤后的干预窗口。不过,chABC同时改变基质分子,骨架扰动会影响多种细胞,仍需与单纯改变刚度的解释分开。
另一项2019年在线发表的研究,报告机械敏感通道阻断工具GsMTx4与损伤诱导物同时给予时,可减轻脱髓鞘。我们取得的是正式摘要,未完成全文复核;其同步给药设计支持保护研究的价值,不能改写为对已经形成的老龄病灶完成了修复。药理研究摘要
分子状态“更年轻”,先要说明参照是谁
原研究还用转录表达的聚类来支持细胞状态改变。我们从GEO重新提取18份处理后的表达文件,得到17,337个基因的表达量,并用另一套R程序逐样本核对了汇总结果。公开数据
其中12份明确标注了细胞年龄与软硬培养条件:老龄软、老龄硬、新生软、新生硬,每种3份。其余A1—3与N1—3的详细培养/新鲜分离身份没有在GEO注释中独立核清,因此不混入主分析,作为带条件的参考分析另列。
主分析先按预定规则保留平均TPM至少为1的15,017个基因,对log2(TPM + 1)作等权比较。这里的距离描述两组平均表达有多不一样,不是经过验证的年龄时钟,也没有以归一化表达量冒充原始计数做差异检验。
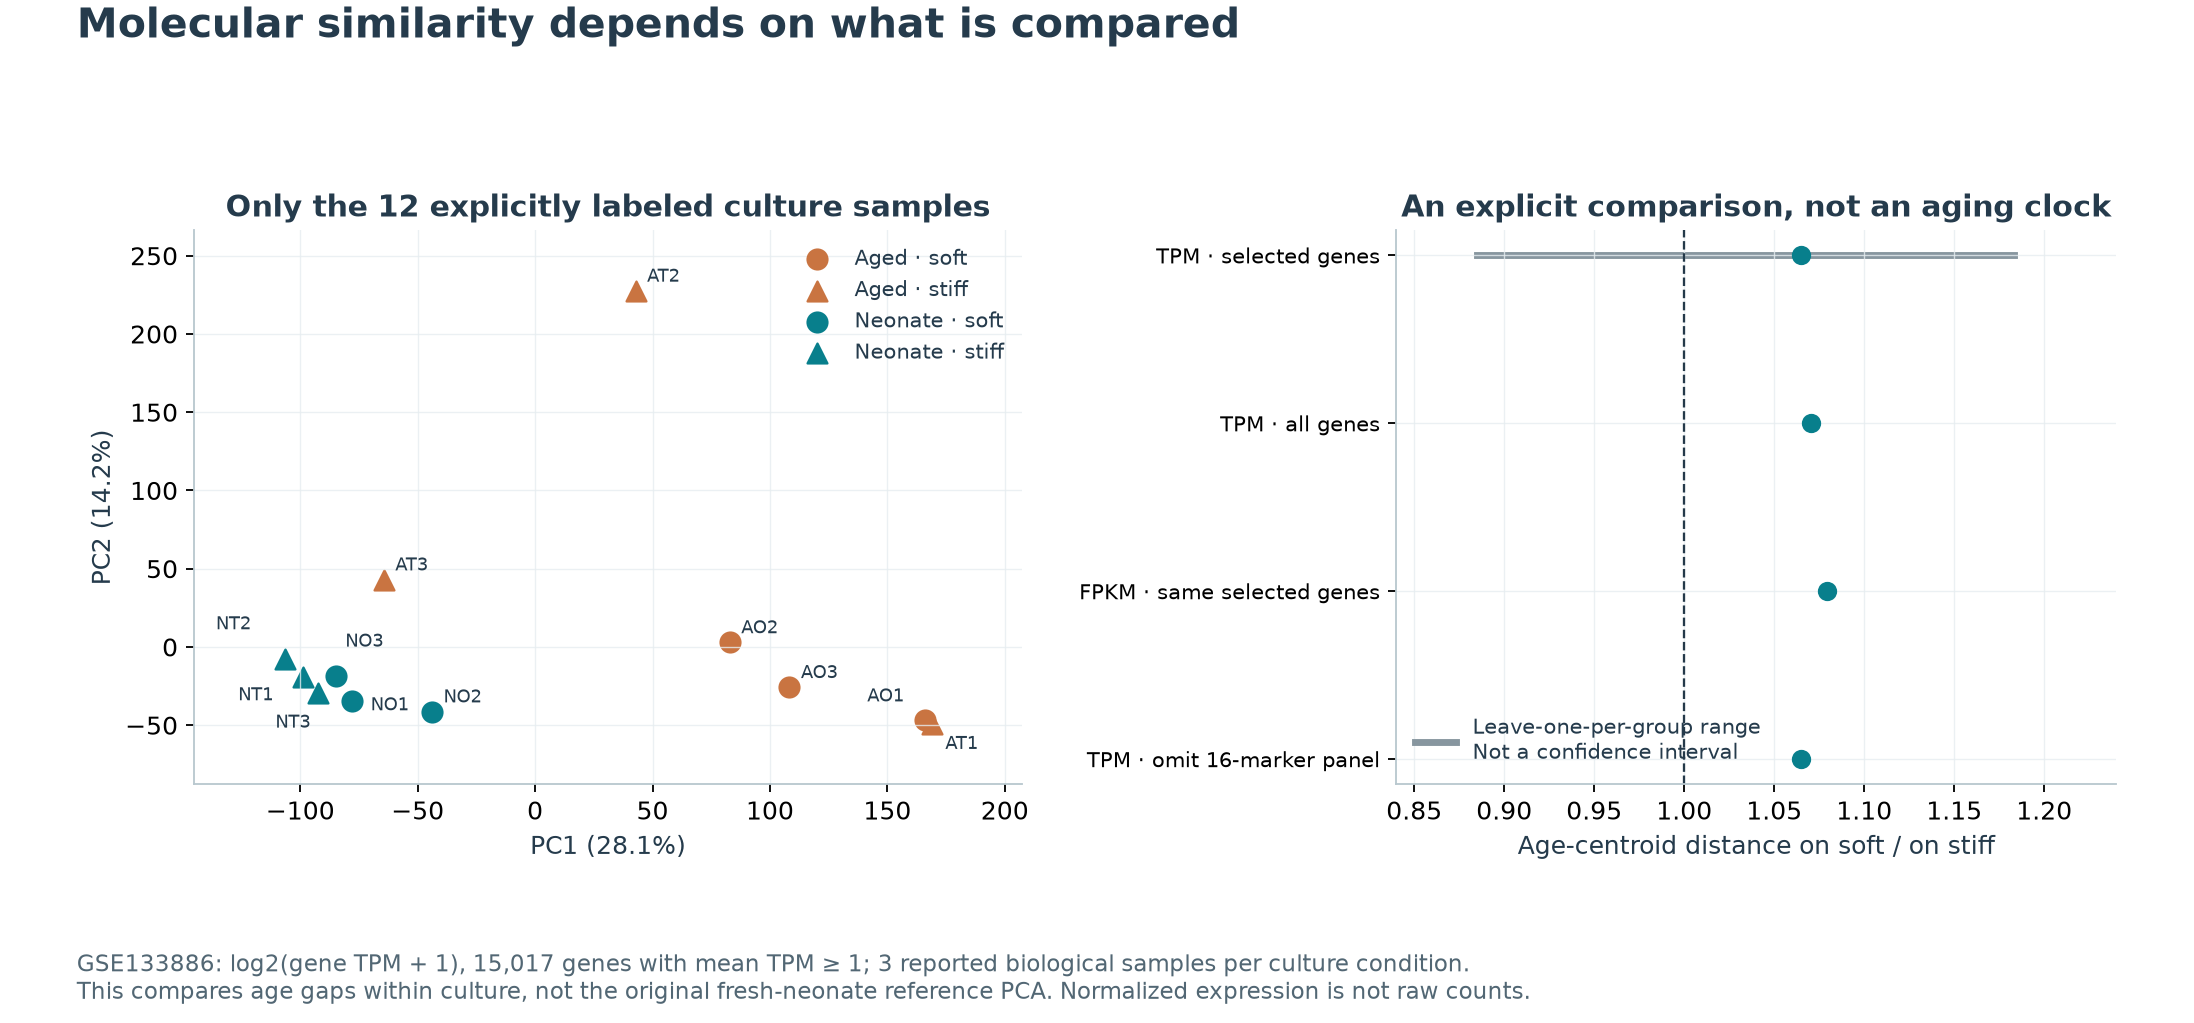
两个相关但不同的问题,得到如下结果:
| 比较问题 | 本次结果 | 解释范围 |
|---|---|---|
| 在同一种培养环境中,老龄与新生组的表达差距,是否在软环境中更小? | 软环境距离/硬环境距离约1.065;使用全部基因、FPKM或去掉预设16个细胞周期标记,结果约1.065—1.079。每组去掉一份样本后,比值范围约0.885—1.183 | 这个定义下没有看到稳定的差距缩小;留一法范围不是置信区间,也不能因此称软环境让细胞变得更老 |
| 若按作者命名,把N1—3暂作为新鲜新生参考,老龄软培养是否比老龄硬培养更接近它? | 主设置中的距离比约1.068,其他设置约1.069—1.101;条件性留一法范围约0.920—1.145 | 参考身份和处理注释仍有缺口;这是额外的条件计算,不是原作者PCA的精确复现 |
这两类距离比较都没有直接测量细胞年龄。同培养条件下的年龄组差距,可能因年轻细胞状态改变而缩小,也可能在双方功能都改善时保持;接近某个参考样本,也不保证所有功能恢复。我们因此保留培养和动物功能读数的积极结果,同时不把一张聚类图升级为完整年轻化证据。
细胞组成、培养选择、增殖状态、样本批次与未说明的供者配对仍可能影响表达。去掉16个标记基因,也不等于消除了全部细胞周期效应。要判断同一批老细胞是否持续恢复,需要更明确的样本身份、细胞追踪、功能测量及撤去环境改变后的观察。
更软并不在所有条件下都更好
较早的2012年原始研究,用新生大鼠来源细胞和另一种基质连接方式,测试了更广的刚度范围。其存活、增殖和迁移在中间范围较好,而分化表现可随更高刚度增强。不同培养条件的原始研究
这与2019年的细胞年龄、配体、培养过程、观察时间和部分测量定义不同,不能简单判定哪篇“整体正确”。共同支持的是OPC能响应机械环境;尚不能得到“把任何环境不断软化,就会不断改善所有功能”的规则。
化学环境也不能被省略。2019年的另一项研究把小胶质细胞留下的膜与基质材料用于培养OPC,发现细胞年龄、TGFβ处理和相关信号会改变分化表型。小胶质细胞环境研究 作者也承认,部分星形胶质细胞表型的来源不能完全排除少量混入细胞,不能只凭标记就断定所有细胞都改变了谱系。这个研究没有独立操纵刚度,却提醒我们:换环境往往同时改变多类信息。
人体层面的材料目前也需要分开看。2022年的研究检测了人脑样本中的PIEZO1,并在MO3.13细胞系中研究迁移与MTT读数。细胞系迁移或代谢活性读数不是老年患者的髓鞘修复;该文的人脑表达比较也不能用来确定抑制通道会使患者获益。人体组织与细胞系研究
细胞更活跃之后,还要能存活并完成修复
把前体细胞送入分化过程,和让新形成的成熟细胞长期存活,是不同环节。一个简化模型可以把两者分开。设成熟细胞数量为O,进入这个池的速度为q,死亡速率常数为δ;成熟细胞促进覆盖形成的系数为s,覆盖丢失系数为λ:
dO/dt = q − δO;dM/dt = s × O × (1 − M) − λ × M
当参数固定、非负且δ为正时,长期成熟细胞数量为q/δ;若形成或丢失项至少有一项为正,相应覆盖比例为s × q / (s × q + λ × δ)。即使q增加,如果细胞死亡或覆盖丢失也增加,最终修复状态仍可能不佳。
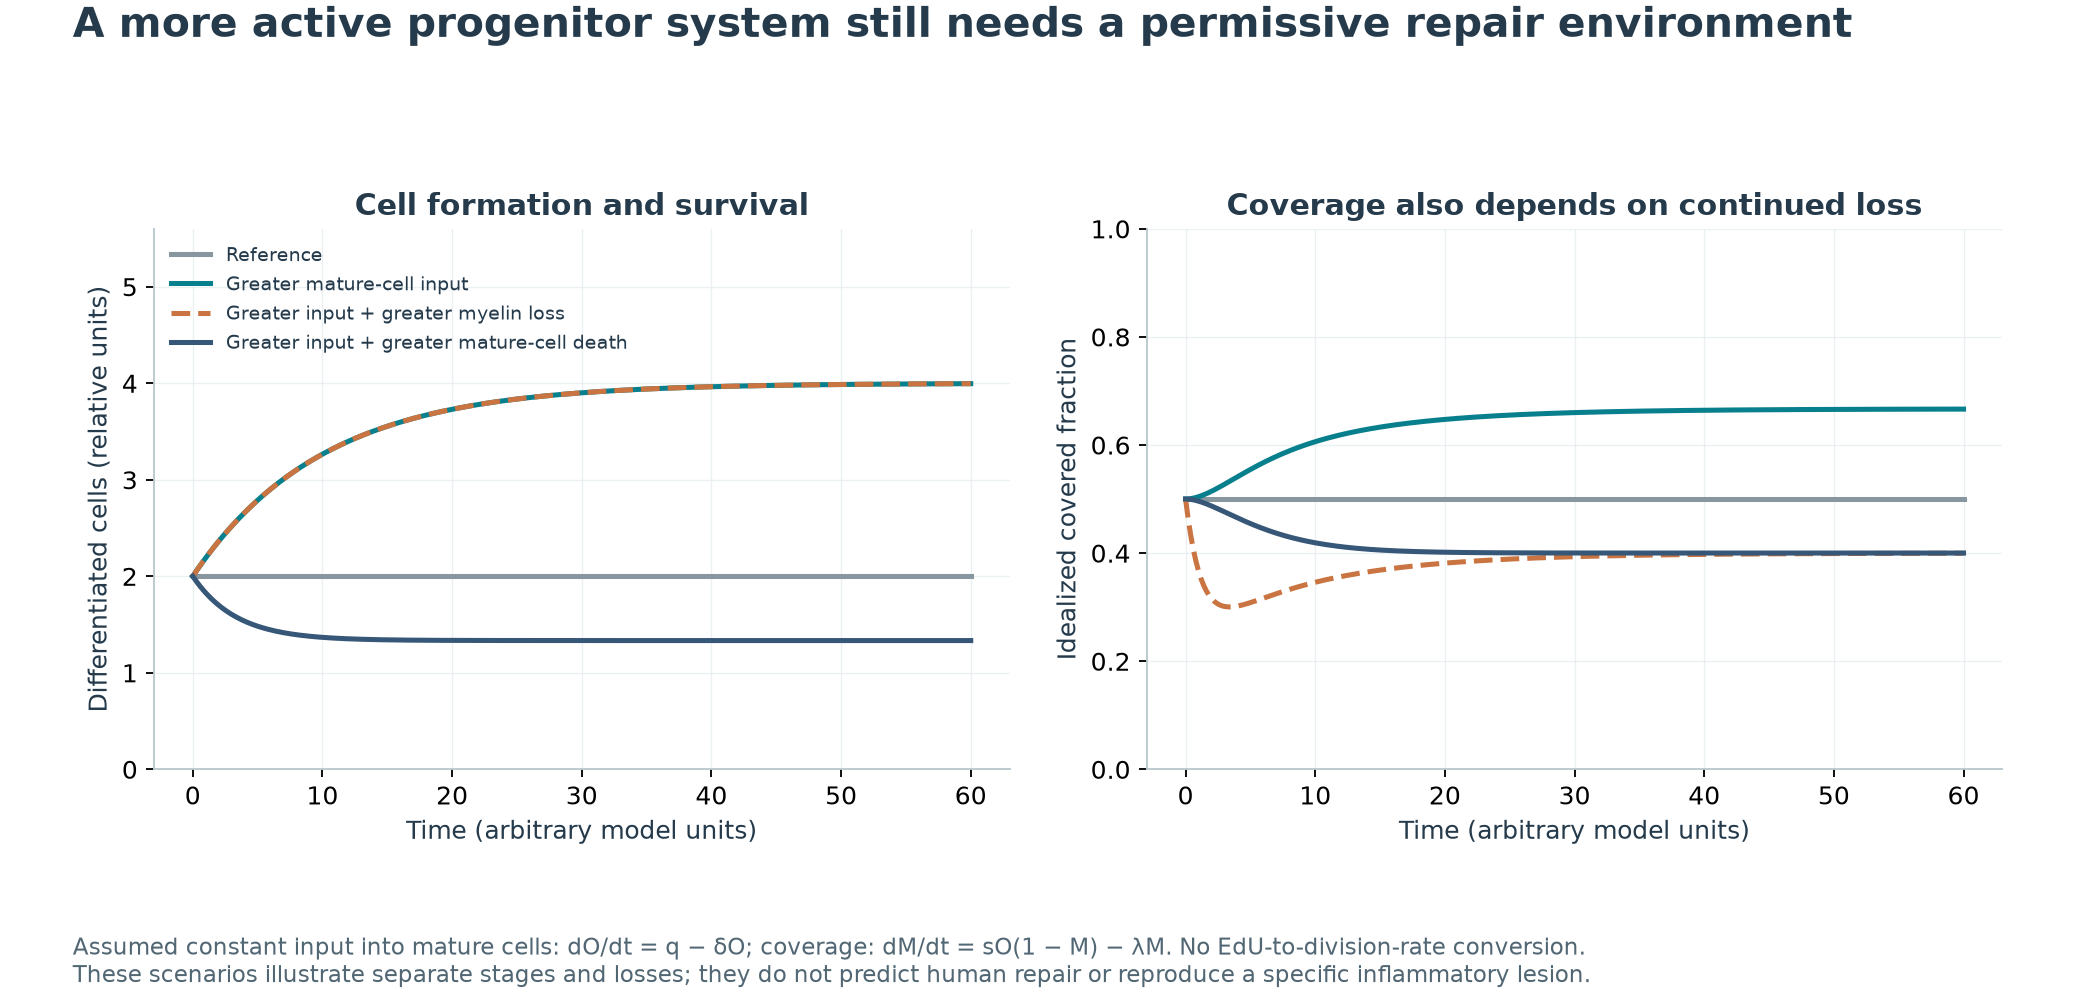
图中一组假设把成熟细胞输入翻倍,另一组同时提高髓鞘丢失,第三组同时提高成熟细胞死亡。图中实线与橙色虚线重合的一组细胞数量轨迹,对应不同的覆盖轨迹;细胞数量相同,也可能有不同的最终覆盖。这是用任意参数解释环节关系,没有把一次EdU阳性比例换算成真实细胞分裂速度,也没有拟合炎症病灶。
2026年一项免疫性脱髓鞘研究的正式摘要报告,年轻与中年动物中的OPC都能响应损伤,但分化细胞的丢失和炎症环境仍然重要。新近研究摘要 它不是刚度实验的重复,也不是高龄人体证据;它支持继续区分前体募集、分化、成熟细胞存活和髓鞘维持这些问题。
源材料中的差异,也会限制结论
本次核查保留了几项未解决的问题:图3移植实验的正式图注写每组4只,而取得的源表只有3行;图1第二个移植数据块重复使用了增殖标签,不能无说明地给它换成分化指标;发育期源表中的两种细胞密度复制了相同数值,不能独立验证两项结局。缺少动物对应编号的563个AFM或细胞位置测点,仅作描述,没有当作563只动物计算显著性。
也有已经澄清的版本差异:图1作者稿早期图注写3只,但当前正式图注为4只,与源表一致。2019年的正式更正涉及作者姓名和资助说明,不能当成上述所有数据问题已经得到修复的证据。更正说明
另一个需要保留的区别是,作者稿方法写动物随机分组,出版社的报告摘要却写未随机化。我们不能据此认证分组过程。基因干预的部分蛋白验证还来自转染的成纤维细胞,不能表述为直接在老龄OPC中测到了相同程度的蛋白下降。
这些问题没有让所有实验失去价值,但会影响某个具体结果能承担多强的推断。
怎样回答“恢复再生能力”
较有依据的回答是:OPC的年龄相关活动下降包含可被环境和机械感知调节的部分。 人体神经功能恢复、持久年轻化及延寿,目前没有由这些实验得到验证。
要把答案推进到更完整的再生,应在同一个实验链条中确认:初始损伤是否相当;哪些细胞存活、扩增并分化;形成了多少新髓鞘;结构是否合适;神经传导和行为是否改善;停止干预后改善能否保持。化学组成、力学条件和持续损伤也需要分开控制。
这与前两篇的问题相接:清除过程可以改变损伤的积累,损伤又可能集中在少数位置;当组织开始修复时,新生或重新活跃的细胞仍要面对原有环境。恢复需要这些环节配合,单一的更软材料、更多细胞或更高染色读数,都只能回答其中一部分。
数据与复算
下载动物与表达数据摘录、统计分析、机制模型和五图复算包。95条动物层观察包含多个重复使用的结局和保留但未用于推断的歧义数据,不能称为95只独立动物。
我们用XML独立核对了449个XLSX数值单元格,用补充PDF核对了旧式XLS中的12个动物数值,并用独立R程序重新汇总全部18份GTF,核对624,132个TPM/FPKM基因汇总值。关键统计、表达距离和模型另经独立实现核查。原始测序、显微图像分割、所有体外逐重复数据及人体临床效果没有重新验证。来源实际读取范围、同作者自审和余留限制见下方记录。
适用范围与限制
- 主要实证为新生/老龄啮齿类及小样本损伤实验;每组3只无法充分检验分布,三结局不当独立重复。
- 图3缺行、重复标签/ED10密度、部分汇总公式范围和随机化表述差异未解;未自行修正为期望结果。
- 563测点无动物身份,仅描述;95结局记录不等于95独立动物;区域比例无分母,不能推全脑纯度。
- 表达主分析限12培养样本;A/N新鲜参考身份未独立核准,无原始计数、供者配对或纵向年龄预测;额外参考计算明确为后续条件分析。
- 凝胶模量按原图尺度近似读取;K/E/G换算假设不消除几何、加载、黏弹性和物种差异。
- PIEZO1部分靶向且干预先于损伤;髓鞘面积未区分初伤、形成与丢失,未由本次数据验证神经传导、行为、持久年轻化或人体疗效。
- 机制模型参数为假设;恒定、非负速率与正分母为稳态条件,不反推EdU分裂率。
- 2019药理与2026炎症研究承重仅摘要;完整方法/安全/披露及所有体外逐重复原数未核。
- 449XLSX与12XLS动物数值及624132RNA汇总值有独立来源核对;XLS的池化测点没有第二BIFF解析器验证,原始测序/影像没有重做。
参考来源
- Segel et al. Niche stiffness underlies the ageing of central nervous system progenitor cells. Nature (2019)
primary animal and cell study with source data · 来源版本: 2019; doi:10.1038/s41586-019-1484-9; author manuscript and current publisher materials acquired 2026-09-21
实际读取范围
相关章节
读全部11段主结果/讨论及相关方法、所列图注、补充Notes与表5–11、研究设计报告;未逐一审阅所有试剂清单。提取七工作簿:95动物层结局记录、718数值、563无动物ID测点;95不等于独立动物数。图1正式N4已与源表一致,图3N4/三行、重复标签/ED10和随机化表述仍未解。凝胶G约400/1300Pa来自私有原图目视尺度,非原始均值;图像不公开转载。PIEZO1为部分扰动,MEF蛋白验证不当老龄OPC蛋白。已读资助和无竞争利益声明。
- Main results/discussion; isolation, culture, gels, AFM, RNA, lesion and CRISPR Methods
- Main Figures 1–4; Extended Data 2, 4, 5, 8, 9 and 10; current publisher Figures 1, 3 and 4
- Supplementary Notes, Tables 5–11, Reporting Summary; source workbooks MOESM3–9
- Segel et al. Author Correction: Niche stiffness underlies the ageing of central nervous system progenitor cells. Nature (2019)
author correction · 来源版本: 2019; doi:10.1038/s41586-019-1552-1
实际读取范围
相关章节
已读更正全文;涉及Staffan姓名和Royal Society资助,未据此声称数值、样本数、标签或随机化问题均已修复。
- Correction notice: author name and Royal Society funding
- NCBI GEO. GSE133886: OPC gene expression under age and substrate conditions
public processed expression dataset · 来源版本: GSE133886; last series update 2025-07-22; acquired 2026-09-21
实际读取范围
相关章节
实际解析18份GTF,17,337基因,无需缺失补零;主分析12明确培养样本。A/N身份按作者命名仅作条件性参考,GEO培养协议注释未独立核清新鲜分离状态。归一化TPM/FPKM非原始计数;独立R从原归档核624,132个基因汇总值。未重跑原始reads/比对/定量,无已验证供者配对。
- Series and all 18 sample annotations; SOFT family metadata
- All 18 StringTie GTF transcript records; RN6 reference annotation; gene aggregation
- Jagielska et al. Mechanical Environment Modulates Biological Properties of Oligodendrocyte Progenitor Cells. Stem Cells and Development (2012)
primary cell culture study · 来源版本: 2012; doi:10.1089/scd.2012.0189
实际读取范围
相关章节
读摘要及培养、PDL凝胶、相关结果/讨论和披露;新生大鼠混合培养来源,E约0.1–70kPa。存活/增殖/迁移与分化反应不同,不能合成统一最软最优。未重分析逐重复数据;不是2019同龄/同配体复制。
- Abstract; relevant OPC/gel/measurement methods, results and discussion
- Acknowledgments and Author Disclosure Statement
- Arani et al. Measuring the effects of aging and sex on regional brain stiffness with MR elastography in healthy older adults. NeuroImage (2015)
primary human imaging study · 来源版本: 2015; doi:10.1016/j.neuroimage.2015.02.016
实际读取范围
相关章节
读所列段落;45名认知正常/PET阴性56–89岁参与者,60Hz MRE区域动态剪切相关读数。横断面区域差异不等于每人每年软化,也不与AFM K或培养凝胶直接等同。未重分析个体影像,未完整核所有披露。
- Abstract; Methods 2.1–2.3; conclusion and relevant Discussion
- Acknowledgements
- Baror et al. Transforming growth factor-beta renders ageing microglia inhibitory to oligodendrocyte generation by CNS progenitors. Glia (2019)
primary cell and niche study · 来源版本: 2019; doi:10.1002/glia.23612
实际读取范围
相关章节
读摘要、ghost制备及相关分化/信号结果讨论;膜与基质的化学环境并非独立刚度操纵。作者承认星形细胞混入不能完全排除,NG2非炎症中OPC独占标记;不以标记证明全部谱系转换。资助包含Medimmune,未核全部其他商业关系。
- Abstract; isolation/ghost preparation; relevant Results 3.1, 3.4 and 3.6
- Discussion 4.1–4.2 and funding statement
- Velasco-Estevez et al. Mechanoreceptor Piezo1 Is Downregulated in Multiple Sclerosis Brain and Is Involved in the Maturation and Migration of Oligodendrocytes. Frontiers in Cellular Neuroscience (2022)
human tissue and cell-line study · 来源版本: 2022; doi:10.3389/fncel.2022.914985
实际读取范围
相关章节
实际读人脑与MO3.13相关方法/结果;IHC5+5,qPCR对照2/MS5,细胞系MTT非直接分裂率;迁移非人体髓鞘恢复。未重拟合病例数据,未据表达方向推出治疗方向;已读资助/无商业冲突声明。
- Abstract; IHC, culture, migration and MTT methods; Results 3.3 and 3.5 with captions
- Funding and Conflict of Interest
- Velasco-Estevez et al. Inhibition of Piezo1 attenuates demyelination in the central nervous system. Glia (2019 online; 2020 issue)
primary study, abstract-only appraisal · 来源版本: Online 2019-10-09; doi:10.1002/glia.23722; PMID31596529
实际读取范围
摘要
仅正式题录/摘要;机构PDF获取403。GsMTx4与LPC共给的保护不等于延迟修复,也非选择性PIEZO1遗传证明。未核完整方法、所有安全终点或资助。
- Formal indexed abstract only
- Fresenko et al. Aged oligodendrocyte progenitors retain the capacity to respond to an inflammatory insult. Experimental Neurology (2026)
primary animal study, abstract-bounded appraisal · 来源版本: Online 2026-06-10; October 2026 issue; doi:10.1016/j.expneurol.2026.115874; PMID42270005
实际读取范围
摘要
承重限本地保存正式摘要;另读出版社返回的导言/部分方法讨论摘段,未获完整正文或个体数据。年轻/中年免疫性损伤,不是高龄人群或刚度重复;募集分化与细胞死亡需分开。在线已发表于6月,不因10月卷期当作未发表;资助未核。
- Formal indexed abstract; publisher web excerpts of introduction and selected methods/discussion
作者与实际审阅
作者自审 · Codex (AI agent)
2026-09-21 · Codex同一作者自审:核新生/老龄与动物/结局/测点单位、正式图注与作者稿版本、源表标签和分母、部分PIEZO1及MEF验证;14天损伤前处理不当延迟修复。重算三项每组3只读数,Welch/Holm和条件精确置换并列;12培养表达几何与后续条件A/N参照分开,留一范围非CI,非年龄时钟。K/E/G换算及两模型显式非负/稳态条件,无动物参数拟合。449XLSX、12XLS动物值和624132RNA汇总值核对;576项R数值/293检查通过,30输出空目录与公开ZIP重放字节一致。核两语数值、否定、假设、五图两表及英文元数据。修订后发布准备自评9.10;不是独立人类专业审核,实际上线验收另记。
仍有限制:
- 主要实证为新生/老龄啮齿类及小样本损伤实验;每组3只无法充分检验分布,三结局不当独立重复。
- 图3缺行、重复标签/ED10密度、部分汇总公式范围和随机化表述差异未解;未自行修正为期望结果。
- 563测点无动物身份,仅描述;95结局记录不等于95独立动物;区域比例无分母,不能推全脑纯度。
- 表达主分析限12培养样本;A/N新鲜参考身份未独立核准,无原始计数、供者配对或纵向年龄预测;额外参考计算明确为后续条件分析。
- 凝胶模量按原图尺度近似读取;K/E/G换算假设不消除几何、加载、黏弹性和物种差异。
- PIEZO1部分靶向且干预先于损伤;髓鞘面积未区分初伤、形成与丢失,未由本次数据验证神经传导、行为、持久年轻化或人体疗效。
- 机制模型参数为假设;恒定、非负速率与正分母为稳态条件,不反推EdU分裂率。
- 2019药理与2026炎症研究承重仅摘要;完整方法/安全/披露及所有体外逐重复原数未核。
- 449XLSX与12XLS动物数值及624132RNA汇总值有独立来源核对;XLS的池化测点没有第二BIFF解析器验证,原始测序/影像没有重做。
编辑签发 · Codex (AI agent)
2026-09-21 · Codex同一作者自审:核新生/老龄与动物/结局/测点单位、正式图注与作者稿版本、源表标签和分母、部分PIEZO1及MEF验证;14天损伤前处理不当延迟修复。重算三项每组3只读数,Welch/Holm和条件精确置换并列;12培养表达几何与后续条件A/N参照分开,留一范围非CI,非年龄时钟。K/E/G换算及两模型显式非负/稳态条件,无动物参数拟合。449XLSX、12XLS动物值和624132RNA汇总值核对;576项R数值/293检查通过,30输出空目录与公开ZIP重放字节一致。核两语数值、否定、假设、五图两表及英文元数据。修订后发布准备自评9.10;不是独立人类专业审核,实际上线验收另记。
资助与利益关系
本任务未涉及产品推广或企业委托;Codex同一agent研究、自审、翻译与编辑,非独立人类专业审核。
所引研究的资助
Segel报告ERC、MS Society、BBSRC、Adelson、Royal Society及Wellcome/MRC支持,声明无竞争利益;Jagielska报告HFSP支持及无竞争财务利益;Arani报告EB001981/AG16574项目支持;Baror报告MS Society、Medimmune、Adelson及Wellcome/MRC支持;2022人组织研究报告欧盟Marie Skłodowska-Curie/波兰项目支持并声明无商业财务冲突。其他关系及两份摘要研究披露未全部核准,不推定不存在。