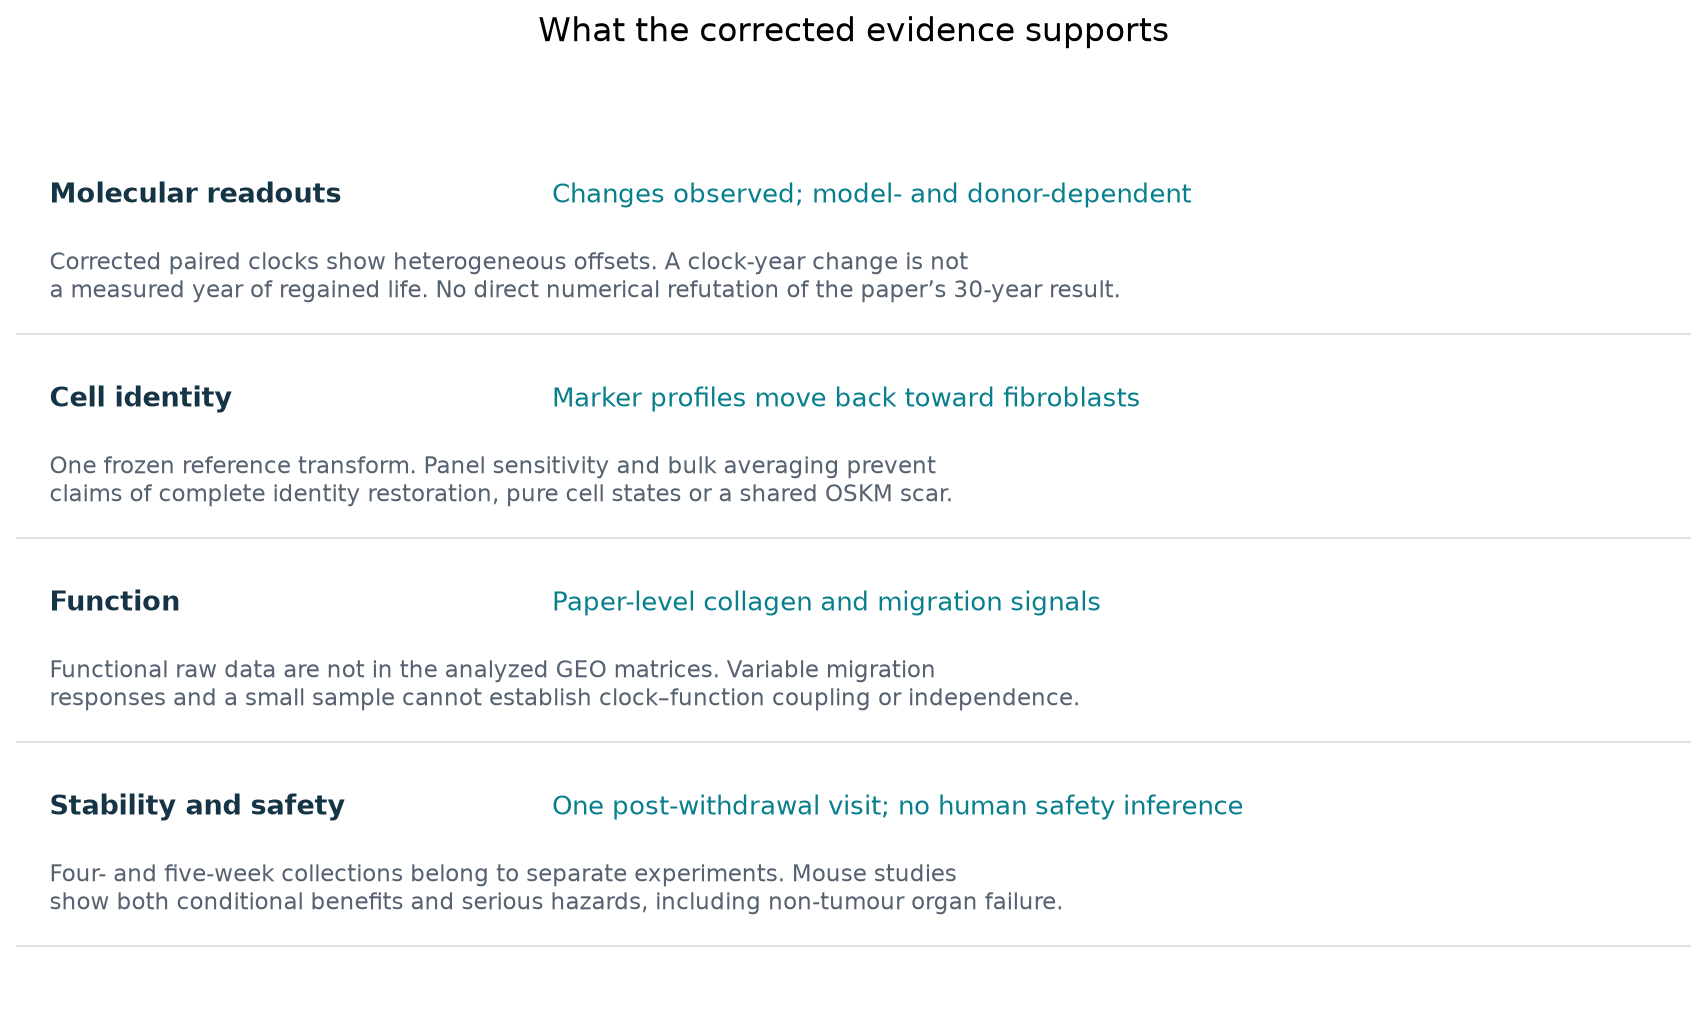
结论是:分子状态确实发生了变化,撤回因子表达后的细胞在所选标志物上重新接近成纤维细胞;但变化幅度依赖供者、处理时间、算法和标志物选择。现有分析不能把变化分解为“真实年龄恢复”和“去分化”的比例,也不能把培养细胞读数换算成人体年轻了多少年。 功能实验提供了有限而有价值的线索,尚未建立时钟变化与功能改善之间的可靠对应关系。
2026-09-19更正: 本次复核修复了缺失CpG处理、PhenoAge截距、RNA跨矩阵标准化及重复测量单位;撤回原稿“约9年反驳30年”“显著相关证明去分化主导”“共同OSKM疤痕”等判断,并纠正三条错误PMID和一项作者归属。下文数字、六张图及复算包均已更新;原作者的自审保留为历史,本次修正由Codex负责。
实验测了什么,比较单位是什么
MPTR部分来自三名供者,年龄为38、53、53岁。研究比较未感染载体、经历相应培养和分选程序的阴性对照,与表达因子后按表面标志分出的重编程群体及未进入相同状态的群体。后者简称“失败组”,是分选后的细胞状态分类,并非随机分配的“失败处理”。设计与分选
公开数据中,瞬时重编程部分有96个甲基化样本、95个RNA样本;另有124个Sendai重编程RNA参照样本用于定义共同评分坐标。样本列是培养物或分选群体,不能被当作同等数量的人。我们从GEO的SOFT元数据核对供者、实验批次和天数;例如“iPSC 13”“iPSC 21”是样本名称,元数据中的重编程时间为51天,不能把名称里的数字当成暴露天数。GEO
主比较先在同一供者、同一实验、相同暴露时长和采集阶段内,减去匹配阴性对照,再在同一供者与时长内平均重复实验。各时长分别给供者等权,不把重复培养扩大成独立生物学样本。第一个实验撤药后四周采集,第二个五周采集;这是两个实验的终点,不是同一批细胞从四周到五周的连续追踪。
数据并不平衡:撤药后重编程组在10、13、15、17天处理条件下分别覆盖3、2、1、3名供者。因此,跨处理时长的差异不能直接被叫作最佳剂量窗口。我们不从三名供者报告总体显著性,也不把最有利的一个条件挑作普遍效果。
时钟读数:有变化,但不是一把统一的尺子
五个时钟都使用作者提供的处理后NOOB甲基化值。修正计算保留每个模型的截距与变换:PhenoAge包含513个CpG和一个60.664的截距,“截距”不是第514个缺失位点。Horvath 2013、Hannum、EpiTOC分别有19、6、31个位点不在当前矩阵中;这次用固定版本Biolearn的外部参考/均值混合插补规则,不能再把全缺失行的空均值称为已完成插补。算法与系数
下表为撤药后重编程组减匹配对照的供者平均差;负值表示模型读数较低,括号是供者差值的最小值到最大值,不是置信区间。
| 暴露时长 | 供者数 | Horvath 2013差值,年 | Skin & blood 2018差值,年 |
|---|---|---|---|
| 10天 | 3 | −13.4(−30.3至−4.1) | −2.7(−21.5至+11.8) |
| 13天 | 2 | −18.5(−22.8至−14.2) | −14.1(−21.4至−6.8) |
| 15天 | 1 | −5.6 | −0.5 |
| 17天 | 3 | −1.3(−6.2至+8.2) | −4.1(−35.8至+19.0) |
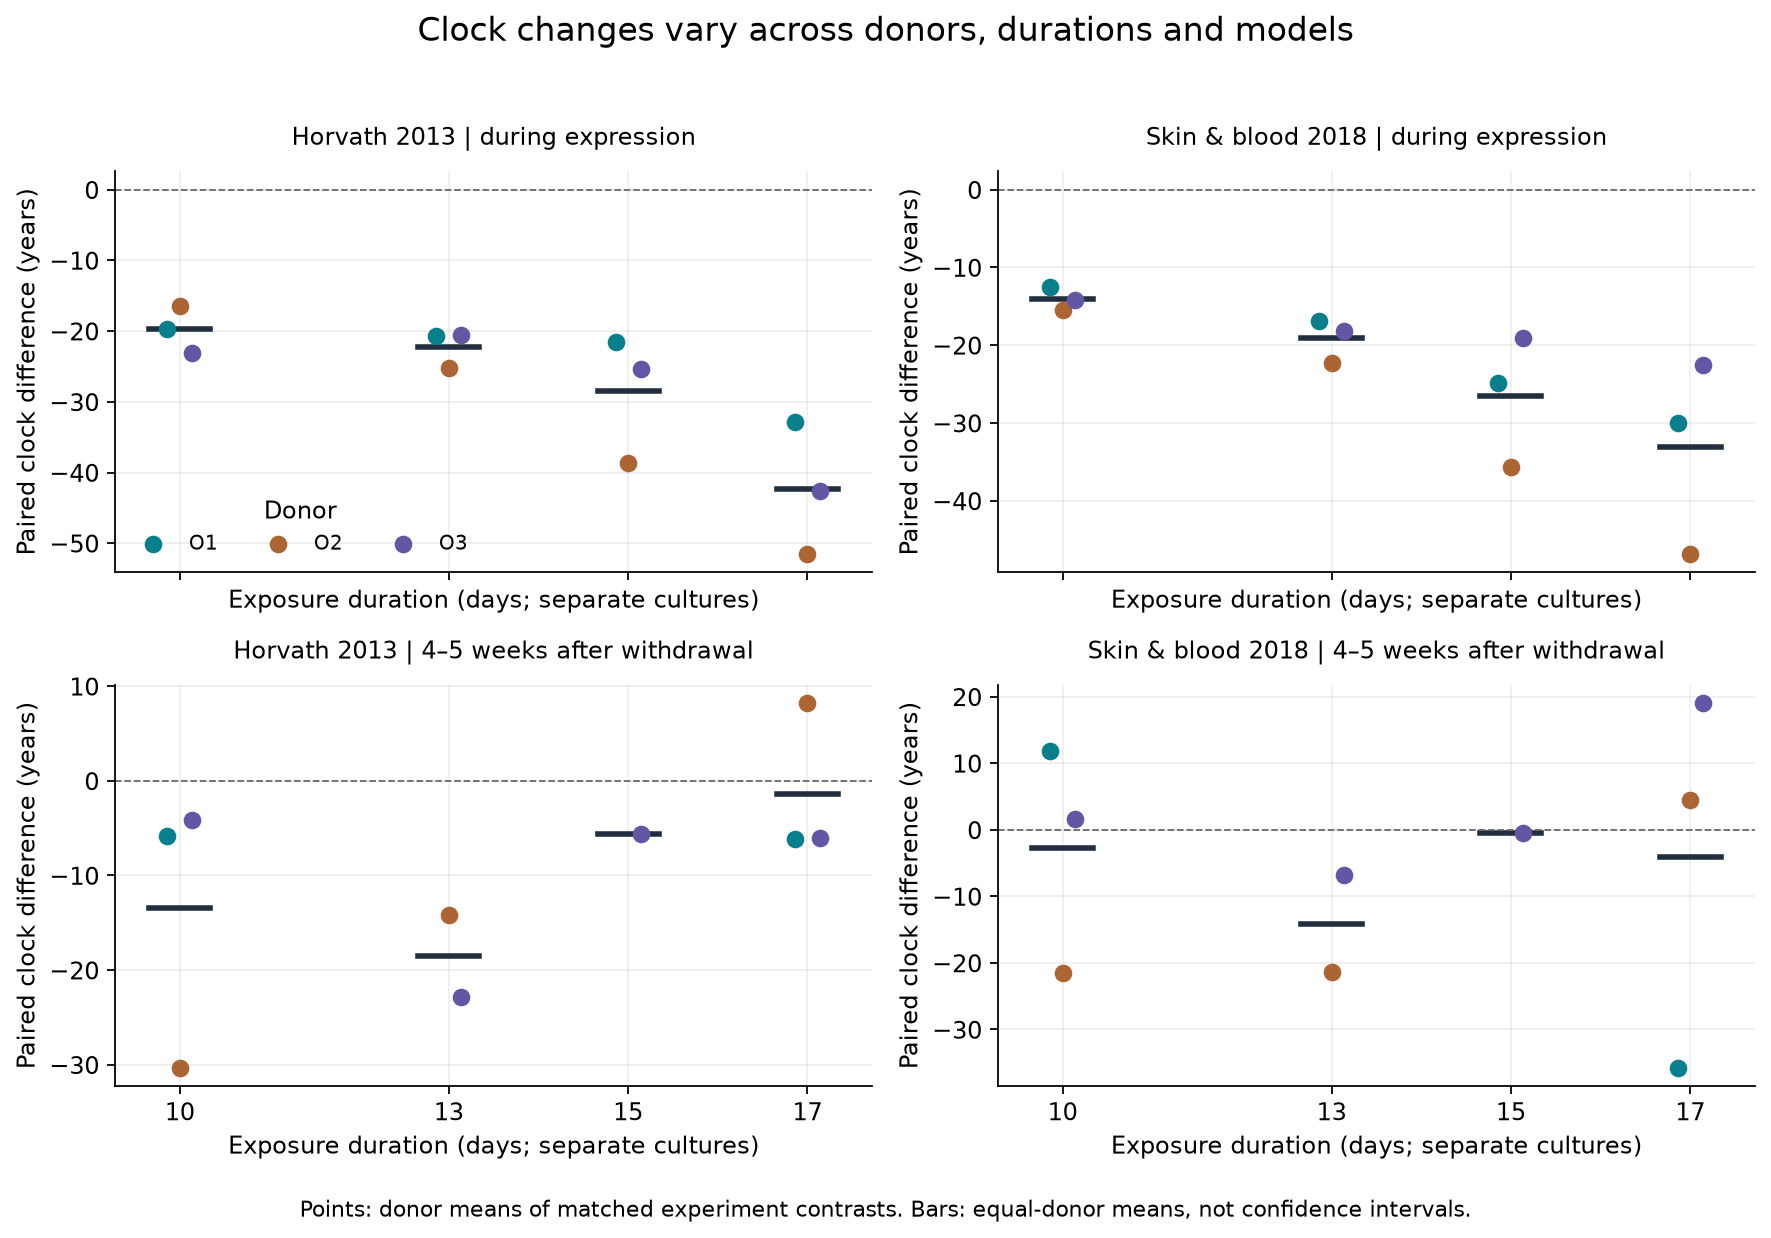
这支持某些培养条件下时钟读数降低,也显示供者间差异和模型敏感性。Skin & blood的391个位点在数据中全部存在,所以它不依赖补齐整个位点;但输入完整不等于已经验证该时钟能测量重编程后的功能年龄。
血液训练时钟也不能概括为“完全不动”。例如PhenoAge在四个时长的配对平均差分别为−17.0、+12.3、+7.3、−9.5年,方向不一致。EpiTOC是另一种分数,不能把它的小数变化与时钟年数直接相比。这些差异说明模型响应不同,不足以挑出一把“真实年龄尺”。
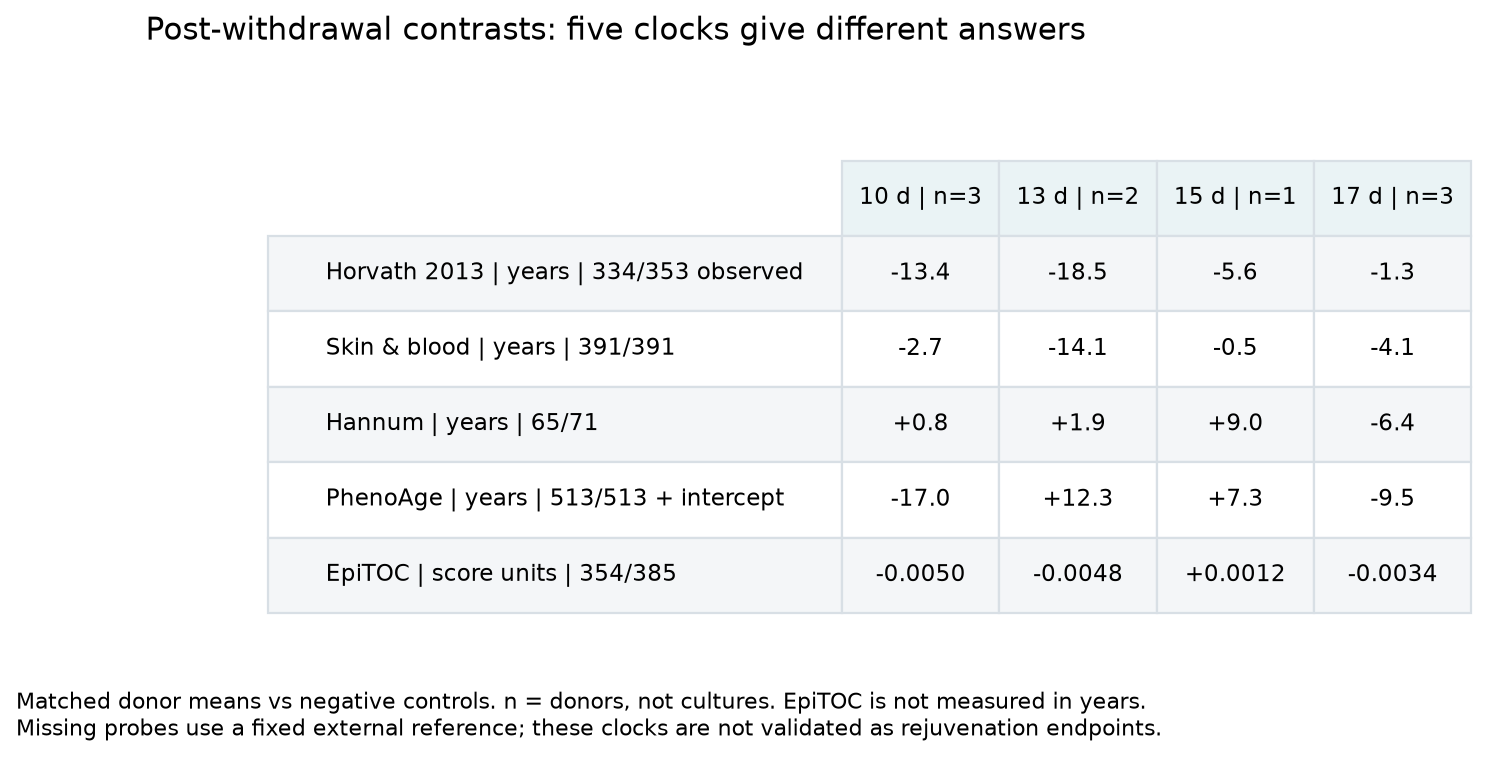
技术核验中,五种时钟×96个样本×两种探针处理共960项结果,与固定版本上游公式一致到浮点精度。额外将检测P值大于0.01的探针值设为缺失再插补,单样本Horvath 2013最大变化约1.27年,Skin & blood约0.015年。这个敏感性分析只检查所用位点,不等于重新完成原始芯片质控,更不验证时钟的生物学解释。
为什么撤回“约9年而非30年”? 原论文的约30年涉及其转录组估计和甲基化分析;本库的旧数字混用了不同供者、时长和未正确实现的算法。即使数字方向类似,不同预处理、模型、平均方式与比较对象也不能直接构成反驳。本次没有重跑论文完整转录年龄模型,也未证明其时钟实现与本库完全相同。Gill的方法写的是minfi/NOOB,不能额外断言作者做了所谓“黄金标准归一化”。准确的增量是上表透明的匹配比较及其不确定边界。论文方法与图3、4
身份评分:用同一个坐标系,结论才可比较
我们预选13个成纤维细胞标志和12个多能性标志,将每个基因按Sendai参照矩阵中的均值与标准差变换,再把同一组固定变换应用到MPTR矩阵。两类标志的差值以参照起始成纤维细胞均值为0、参照iPSC端点均值为1。这是探索性表达评分;0.3不代表30%的细胞已重编程,也不是细胞纯度。
修正后,MPTR重编程群体的轴中位数从暴露期约0.26回到撤药后约−0.23,MPTR的iPSC参照约1.02。阴性对照也落在负值区域:两个系列之间仍有培养和批次差异,不能强迫所有成纤维细胞都等于0。方向上,这与论文观察到的成纤维细胞样特征重获相容;不能据此证明每个细胞完全回到原身份。原文身份分析
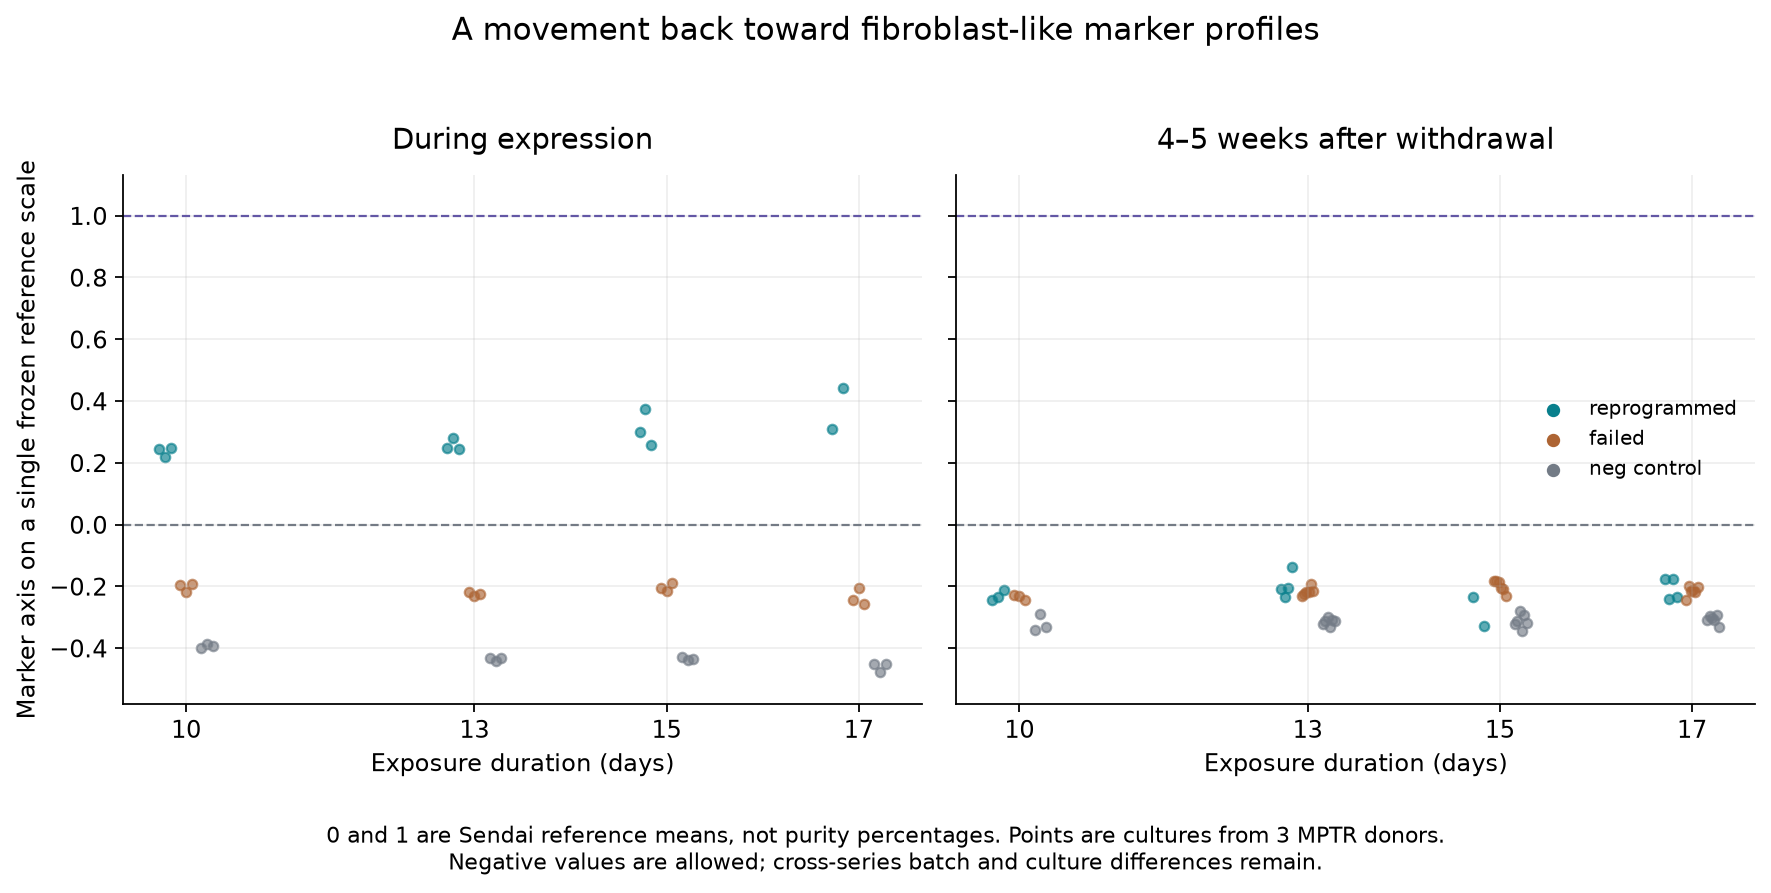
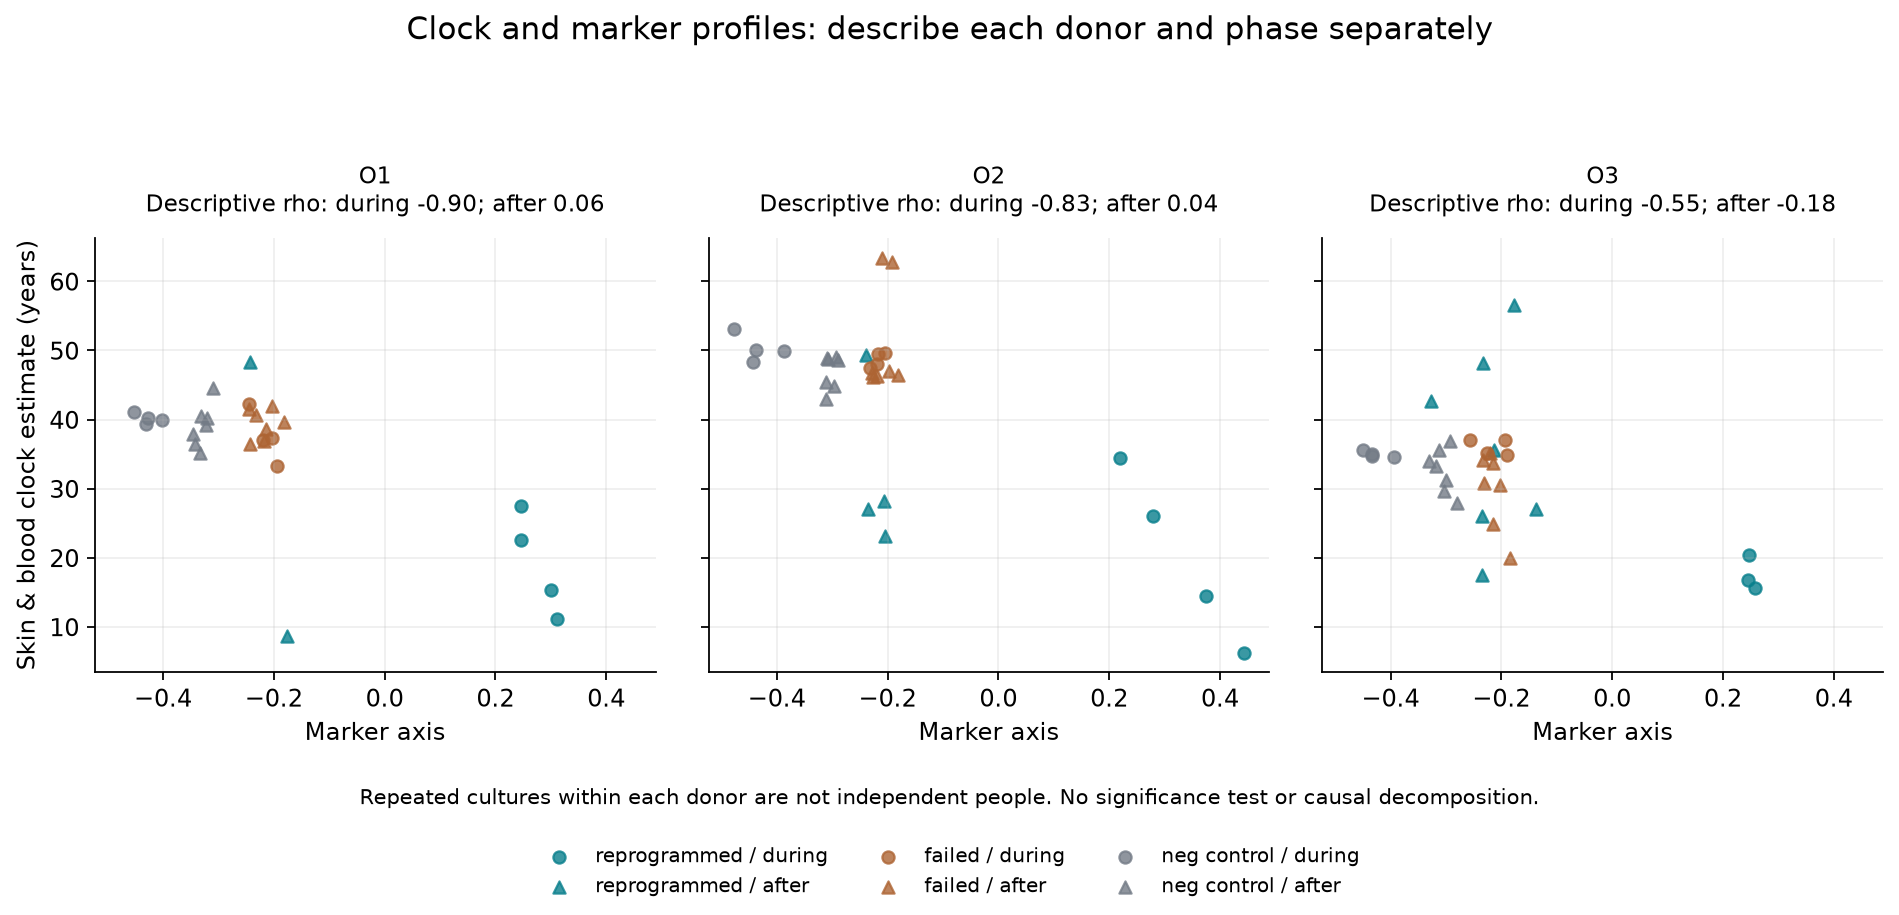
跨模态只连接相同培养条件标签的群体读数,不是逐细胞轨迹。分别看三名供者,暴露期Skin & blood时钟与身份轴的描述性相关系数约为−0.90、−0.83、−0.55;撤药后约为0.06、0.04、−0.18。这里的点仍有条件与时间结构,相关性也混合了对照和不同分选状态。它们提示两个读数在暴露期共同变化,不能确定哪个过程主导,也不能计算去分化解释了多少年龄变化。原先把68个组格视为独立样本得到的P值已撤回。
“多能性残留”对标志物选择有多敏感
原稿把撤药后多能性分数抬高称为“共同OSKM疤痕”。但12个标志中含POU5F1和SOX2,它们本身属于被外源表达的因子;当前基因级数据不能可靠区分内源和载体来源。
同供者配对后,重编程组四个时长的12标志平均分差约为+0.17至+0.42;去掉上述两项后,10标志的差降为约+0.001至+0.096。失败组也对这个选择敏感。单位是基于参照标准化后的基因分数平均值,不是已经标定的生物效应SD。
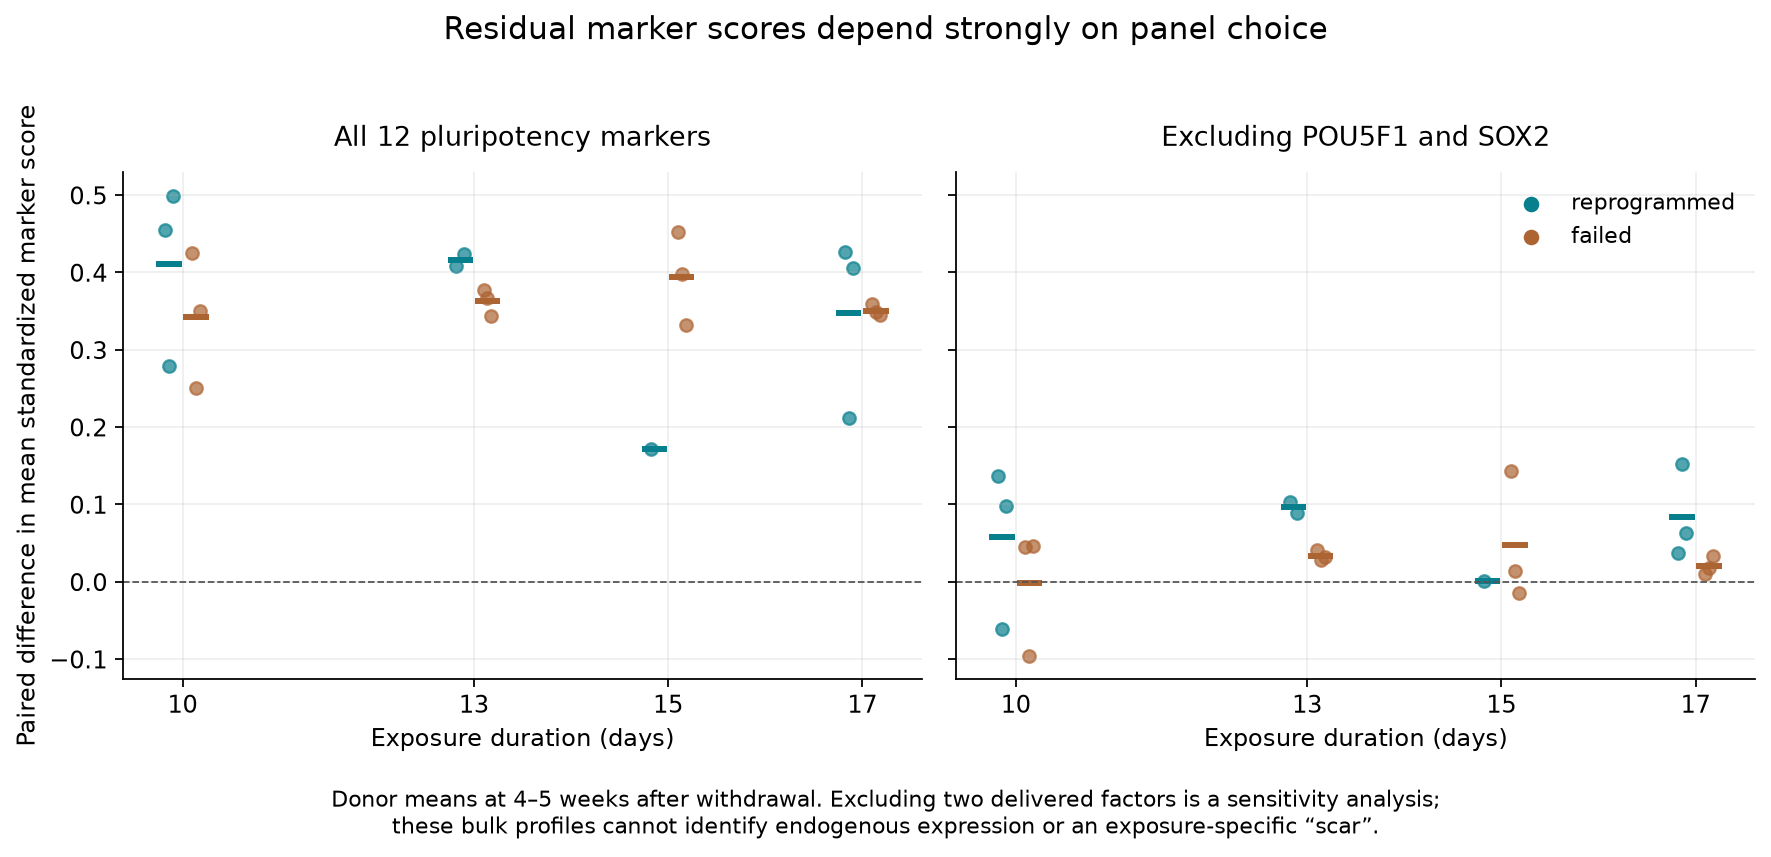
这不是证明差异全由载体造成,也不是证明剩余小差异无意义;它表明“持续多能性程序”的结论依赖评分定义。由于成功、失败群体由处理后状态分选,失败组同样不能给“选择效应”画出因果上限。
| 竞争解释 | 本次观察支持到哪里 | 还需要什么来区分 |
|---|---|---|
| 部分年龄相关分子状态恢复 | 撤药后仍见一些时钟偏移,同时标志物接近成纤维细胞 | 同一体系内的重复功能结局、长期读数及适用时钟验证 |
| 去分化相关状态改变 | 暴露期身份与时钟共同变化 | 能分离身份程序与功能恢复的扰动,而非仅相关 |
| 分选、增殖和亚群替换 | bulk数据及处理后分选无法排除 | 谱系追踪、单细胞与细胞组成信息 |
| 测量算法或标志物响应 | 时钟间不一致,评分对两项因子敏感 | 跨平台、独立数据和预先定义读数的验证 |
四种解释可以同时发生,当前设计不足以替它们分配比例。
功能实验存在,但不能由时钟代替
Gill论文报告了胶原I/IV表达与免疫荧光结果,以及划痕迁移实验。胶原I转录恢复未达其统计阈值,蛋白读数有向年轻方向改变;迁移比较中部分配对培养群体改善,部分没有明显改善。作者也指出迁移变化没有表现出与其他年龄指标的一致对应。图3及补充图、方法和审稿回复
这些是功能与表型线索,不能因GEO组学矩阵不包含它们就写成“没有功能证据”。反过来,小样本未显示相关也不证明时钟与功能已经脱钩。本次没有取得可与组学条件可靠连接的功能原始数据,故没有重新估计时钟—迁移相关,更不能把伤口培养皿结果当成人体组织修复或健康寿命。
其他方案也报告过培养细胞的年龄相关表型改善,例如Sarkar等的非整合瞬时表达研究;不同细胞类型、因子组合和测量流程之间,没有直接共同对照就不能排名“年轻化多少年”。Sarkar 2020
安全与体内获益:必须保留具体条件
撤药后四至五周采集到某种状态,不证明它在此前每一天连续稳定,也不能回答长期肿瘤或器官风险。以下小鼠证据提供边界,不是对Gill培养细胞结果的直接重复。
| 证据 | 支持的范围 | 不能推出 |
|---|---|---|
| Abad 2013:短暂诱导后出现多器官畸胎瘤 | 体内表达因子可产生危险重编程状态 | 危害只在“持续表达”时出现 s5 |
| Ohnishi 2014:撤回表达后出现未分化肿瘤 | 某些中间状态及撤回方案并不安全 | 任何早停方案都必然致癌 s6 |
| Parras 2023:持续表达下肝肠功能障碍与早死,避开两器官可减轻毒性 | 组织选择影响毒性 | 未见肿瘤就等于全身安全 s7 |
| 2026肝脏研究:持续系统表达伴氧化应激、肝损伤和无肿瘤早死 | 非肿瘤毒性也必须观察;本次只复核摘要 | 抗氧化干预已解决人体重编程安全 s14 |
| Lu 2020:靶向小鼠视网膜的OSK与视觉功能改善 | 特定组织和模型中的功能证据 | 全身延寿或人体视觉疗效 s9 |
| Ocampo 2016、Chondronasiou 2022 | 分别涉及早衰鼠寿命/普通鼠修复,以及自然衰老鼠多组学读数 | 两者都已证明普通人延寿 s10、s11 |
| Cano Macip等2024:高龄雄鼠基因治疗研究 | 作者报告剩余中位寿命增加;本次核对摘要和动物方法 | “总寿命翻倍”、两性适用或安全问题已解决 s12 |
组织损伤和细胞衰老本身还会影响重编程环境,进一步限制简单的全身外推。Mosteiro 2016 这些研究的物种、因子、递送和观察期不同;本篇没有系统合并其效应,也不提供重编程操作或用药方案。
本次分析的范围与复算
本次使用作者处理后的甲基化与表达矩阵,未重跑原始IDAT或FASTQ,也未复现整套转录年龄模型。三个MPTR供者、分选后的bulk样本、不同条件的缺样、参照批次和探索性标志评分,均限制推广。即使程序计算正确,也不能自动把模型输出解释为生物学年龄的真实改变。
复算包包含修正代码、输入来源及哈希、配对输出、标志物参考和图表;原始大矩阵按清单从GEO取得。旧程序与结论留有内部修订快照,当前附件不再保留失效的显著性表。来源核查更新至2026-09-19;正文及英文版由本次返修agent自审,这不是独立临床或人类专业审核。
适用范围与限制
- MPTR独立供者仅3,终末各时长供者3/2/1/3;重复培养、条件格和参考样本不扩大干预人群n。
- 使用处理矩阵;缺位点参考插补、无原始IDAT/FASTQ重算;未复现论文完整时钟/转录年龄流程。
- 共同RNA参考变换修复坐标错误,但跨系列批次、bulk组成与探索性标志物选择仍在。
- 跨模态按培养条件标签连接,描述相关不证明机制主导、因果份额或功能脱钩。
- 功能证据限原论文相关结果;未取得可链接功能原始数据。四/五周为两个实验各一次采集。
- 体内背景为代表性原始来源,实际阅读范围不同;没有系统安全估计或人体获益验证。
参考来源
- Gill D et al. Multi-omic rejuvenation of human cells by maturation phase transient reprogramming. eLife 2022;11:e71624
paper · 来源版本: eLife 2022;11:e71624; DOI 10.7554/eLife.71624; checked 2026-09-19
实际读取范围
相关章节
本轮回读设计/分选/培养、DNA分析、图1/3/4及补图、功能方法/结果、相关审稿回复与利益声明;不将下载等同新阅读全文。
- 方法:实验1/2撤药4/5周;minfi/NOOB与时钟;图3及补图的胶原/迁移;图4;利益声明。
- GEO SuperSeries GSE165180: Multi-omic rejuvenation of human cells by maturation phase transient reprogramming (GSE165176/177/178/179)
dataset · 来源版本: GEO processed matrices and SOFT metadata; checked 2026-09-19
实际读取范围
全文
核对三个使用的子系列SOFT与矩阵样本名、供者/实验/时长;95匹配培养标签非逐细胞。另一个Sendai甲基化矩阵未用于本次计算。
- GSE165176/177/179处理矩阵与SOFT;inputs.json逐文件指纹。
- Biolearn clock coefficients and imputation implementation, pinned revision 0d714f5
method · 来源版本: Commit 0d714f5a0c0ad5743b6315f3edab1f86112d394f; checked 2026-09-19
实际读取范围
相关章节
固定提交读取LinearModel/LinearMethylationModel、hybrid_impute和模型定义;原5系数表逐值与固定版本一致;960结果交叉核对。
- model.py线性预测/截距/变换,model_gallery.py缺失策略,imputation.py混合规则。
- Sarkar TJ et al. Transient non-integrative expression of nuclear reprogramming factors promotes multifaceted amelioration of aging in human cells. Nat Commun 2020
paper · 来源版本: Original publication; abstract rechecked 2026-09-19
实际读取范围
摘要
原作者曾记录全文阅读;本轮回读摘要,当前仅用于有限背景比较,不独立重算其效应。
- 摘要的人群/物种、主要对象与结局。
- Abad M et al. Reprogramming in vivo produces teratomas and iPS cells with totipotency features. Nature 2013
paper · 来源版本: PMID 24025773; DOI 10.1038/nature12586; checked 2026-09-19
实际读取范围
摘要
本轮纠正无关PMID后,读取正确原论文摘要;限定相应小鼠方案,未新增全文审计。
- 摘要:表达/撤回条件及对应危害。
- Ohnishi K et al. Premature termination of reprogramming in vivo leads to cancer development through altered epigenetic regulation. Cell 2014
paper · 来源版本: PMID 24529372; DOI 10.1016/j.cell.2014.01.005; checked 2026-09-19
实际读取范围
摘要
本轮纠正无关PMID后,读取正确原论文摘要;限定相应小鼠方案,未新增全文审计。
- 摘要:表达/撤回条件及对应危害。
- Parras A et al. In vivo reprogramming leads to premature death linked to hepatic and intestinal failure. Nature Aging 2023;3:1509–1520
paper · 来源版本: PMID 38012287; DOI 10.1038/s43587-023-00528-5; checked 2026-09-19
实际读取范围
摘要
本轮纠正无关PMID后,读取正确原论文摘要;限定相应小鼠方案,未新增全文审计。
- 摘要:表达/撤回条件及对应危害。
- Mosteiro L et al. Tissue damage and senescence provide critical signals for cellular reprogramming in vivo. Science 2016
paper · 来源版本: Science 2016; PMID 27884981; checked 2026-09-19
实际读取范围
摘要
本轮回读摘要;损伤/衰老与重编程环境只作机制背景。
- 摘要。
- Lu Y et al. Reprogramming to recover youthful epigenetic information and restore vision. Nature 2020
paper · 来源版本: Original publication; abstract rechecked 2026-09-19
实际读取范围
摘要
原作者曾记录全文阅读;本轮回读摘要,当前仅用于有限背景比较,不独立重算其效应。
- 摘要的人群/物种、主要对象与结局。
- Ocampo A et al. In vivo amelioration of age-associated hallmarks by partial reprogramming. Cell 2016
paper · 来源版本: Original publication; abstract rechecked 2026-09-19
实际读取范围
摘要
原作者曾记录全文阅读;本轮回读摘要,当前仅用于有限背景比较,不独立重算其效应。
- 摘要的人群/物种、主要对象与结局。
- Chondronasiou D et al. Multi-omic rejuvenation of naturally aged tissues by a single cycle of transient reprogramming. Aging Cell 2022
paper · 来源版本: Original publication; abstract rechecked 2026-09-19
实际读取范围
摘要
原作者曾记录全文阅读;本轮回读摘要,当前仅用于有限背景比较,不独立重算其效应。
- 摘要的人群/物种、主要对象与结局。
- Cano Macip C et al. Gene Therapy-Mediated Partial Reprogramming Extends Lifespan and Reverses Age-Related Changes in Aged Mice. Cell Reprogram 2024
paper · 来源版本: PMID 38381405; DOI 10.1089/cell.2023.0072; checked 2026-09-19
实际读取范围
相关章节
纠正Browder/Chondronasiou错误归属;回读摘要、动物/FI方法、部分寿命结果和利益/资助声明;未独立复算。
- 摘要、Mouse studies and frailty scores、Results相关段、Author Disclosure/Funding。
- 旧站第 122 篇:细胞重编程技术——让人体器官'返老还童'的 Yamanaka 因子
legacy · 来源版本: WordPress post 122; publication mapping retained
实际读取范围
相关章节
作为旧站第122篇原位更新身份和既有快照;不是支持科学主张的证据。
- 既有公开篇目映射与保存的旧稿。
- Eom H-J et al. Oxidative stress drives liver failure during in vivo partial reprogramming. Molecules and Cells 2026
paper · 来源版本: DOI 10.1016/j.mocell.2026.100378; published 2026-06-04; checked 2026-09-19
实际读取范围
摘要
取得全文但本轮只读取摘要;作为非肿瘤毒性背景,不独立验证通路或抗氧化处理效应。
- 摘要:持续系统OSKM、氧化应激及无肿瘤早死。
作者与实际审阅
作者自审 · Codex (AI agent)
2026-09-19 · REVIEW-001实质返修自审:核对Gill承重设计/方法/功能相关段与GEO三子系列;重跑五时钟和共同RNA参考、同供者同实验配对及标志面板敏感性,960结果与固定上游实现交叉核对,逐条验证配对键;撤回伪重复P值及年龄/身份/选择/功能过度推断;更正3个PMID与作者归属,体内背景限实际摘要/段落读取范围;对照两语数字、来源、六图及附件。Codex为返修共同作者,属于同一agent自审,不是独立、人类或临床专业审核;原作者未重新签发。
仍有限制:
- MPTR独立供者仅3,终末各时长供者3/2/1/3;重复培养、条件格和参考样本不扩大干预人群n。
- 使用处理矩阵;缺位点参考插补、无原始IDAT/FASTQ重算;未复现论文完整时钟/转录年龄流程。
- 共同RNA参考变换修复坐标错误,但跨系列批次、bulk组成与探索性标志物选择仍在。
- 跨模态按培养条件标签连接,描述相关不证明机制主导、因果份额或功能脱钩。
- 功能证据限原论文相关结果;未取得可链接功能原始数据。四/五周为两个实验各一次采集。
- 体内背景为代表性原始来源,实际阅读范围不同;没有系统安全估计或人体获益验证。
编辑签发 · Codex (AI agent)
2026-09-19 · REVIEW-001实质返修自审:核对Gill承重设计/方法/功能相关段与GEO三子系列;重跑五时钟和共同RNA参考、同供者同实验配对及标志面板敏感性,960结果与固定上游实现交叉核对,逐条验证配对键;撤回伪重复P值及年龄/身份/选择/功能过度推断;更正3个PMID与作者归属,体内背景限实际摘要/段落读取范围;对照两语数字、来源、六图及附件。Codex为返修共同作者,属于同一agent自审,不是独立、人类或临床专业审核;原作者未重新签发。
资助与利益关系
无。本篇为公开数据复算与证据分层。
所引研究的资助
Gill披露Reik的Altos任职/相关咨询持股,以及Stubbs的Chronomics职务持股。Cano Macip等2024披露Rejuvenate Bio雇佣及相关专利,并注明美国特种作战司令部资助;属于具体论文利益/资助背景,不替代方法审查。